v
Stem Cell Engineering and Germplasm Resource Innovation

Conservation of endangered cattle germplasm resources: Technological integration and paradigm shift

  • Liting Lu , 1 ,
  • Jing Wang 2 ,
  • Yang Yu 1 ,
  • Shigang Gu 2 ,
  • Yi Zhang 1 ,
  • Yurong Zhang 2 ,
  • Dawei Yu , 2 ,
  • Yongye Huang , 1
Expand
  • 1. College of Life Science and Health, Northeastern University, Shenyang, 110169, Liaoning
  • 2. Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing, 100193

Received date: 2025-12-05

  Online published: 2026-09-10

Abstract

Large animals worldwide, particularly endangered cattle species, faced multiple threats including habitat loss, population fragmentation, and genetic diversity erosion. These species are not only crucial components for maintaining ecosystem structure and function but also embody profound cultural and historical significance. However, traditional conservation strategies, which primarily relied on habitat protection and captive breeding, proved inadequate in addressing emerging challenges such as genetic degradation in small populations and climate change. These limitations hindered effective prevention of ongoing genetic diversity loss and the decline in long-term population viability. To address these issues, this study undertook a systematic exploration of how technological integration could drive a fundamental transformation in the conservation paradigm. The investigation examined multiple aspects: the decoding of genomic information, the integration of multi-omics data, breakthroughs in reproductive and genetic engineering technologies, and the establishment of intelligent monitoring systems. The ultimate objective was the development of a replicable and scalable systematic conservation framework. This framework aims to achieve a transition from passive "rescue conservation" to proactive "sustainable recovery," with the goal not only of preventing species extinction but also of restoring the health, adaptability, and evolutionary potential of wild populations.

Cite this article

Liting Lu , Jing Wang , Yang Yu , Shigang Gu , Yi Zhang , Yurong Zhang , Dawei Yu , Yongye Huang . Conservation of endangered cattle germplasm resources: Technological integration and paradigm shift[J]. The Chinese Livestock and Poultry Breeding, 2026 , 22(9) : 78 -84 . DOI: 10.19543/j.cnki.1673-4556.20260714.001

全球大型动物,尤其是濒危牛种,正面临栖息地丧失、种群碎片化与遗传多样性下降等多重威胁[1-2]。这些物种不仅是维持生态系统结构与功能的关键成员,还承载着深厚的文化与历史记忆。然而,传统以栖息地保护与圈养繁殖为主的保护策略,在应对小种群遗传退化和气候变化等新兴挑战时已显乏力,难以有效遏制遗传多样性的持续流失与种群长期生存力的衰退[3-4]。因此,如何通过技术融合推动保护范式的根本性转变,已成为当前保护生物学与畜牧科学交叉领域亟待解决的核心问题。
近年来,随着基因组学、生殖工程、信息技术等领域的迅猛发展,濒危物种保护已逐步从传统生态管理向技术驱动型保护模式过渡[5]。在基因组层面,全基因组测序与多组学整合为理解种群遗传结构、有害突变负荷及环境适应性提供了前所未有的工具[6-7]。在生殖技术方面,体细胞核移植(Somatic cell nuclear transfer, SCNT)、体外胚胎生产及诱导多能干细胞(Induced pluripotent stem cells, iPSCs)技术已在多种濒危有蹄类动物中实现突破,为遗传资源的保存与复壮提供了可行路径[8-9]。同时,人工智能与物联网技术正逐步应用于物种监测与栖息地评估,提升保护管理的精准性与时效性[10-11]。这些研究成果为濒危牛种保护奠定了坚实的技术基础,标志着保护生物学正进入一个多技术融合、系统化管理的新阶段。
濒危牛种质资源范围涵盖从野生牛科物种到珍稀地方品种与生态型;针对此类资源的保护,本研究提出了技术融合的路径,即将基因组学、生殖工程、基因编辑与信息技术等多种前沿技术有机结合,构建一个协同增效的综合保护工具体系范式。范式重构强调从被动、零散的“抢救式保存”转向主动、系统的“可持续恢复”,侧重恢复种群的健康、适应性与进化潜力。当前传统保护模式在遗传多样性维持、种群恢复潜力等方面存在明显不足,并且新兴技术在实际应用中尚未形成体系化整合。本研究旨在系统梳理濒危牛种质资源保护领域的技术进展与范式演变,探讨如何通过多技术融合构建可复制、可推广的系统保护方案。

1 濒危牛种种质信息解码

1.1 基因组时代的保护生物学

高通量测序技术的普及使保护生物学进入基因组学时代。通过全基因组测序,可精准评估种群近交系数、有害突变负荷与历史有效种群大小,为制定保护优先级与育种策略提供定量依据。
群体水平全基因组重测序可超越传统微卫星标记,通过纯合片段分析精确计算个体基因组近交系数,揭示远古与近代近交事件[12]。例如,对欧洲野牛(Bison bonasus)的基因组分析不仅确认其历史上的瓶颈事件,还量化了现存种群的高水平近交,为跨国育种计划提供了关键数据[13]。基因组数据还可系统评估群体有害突变负荷。通过将单核苷酸多态性与功能注释数据库比对,利用Scale-invariant feature transform和Polymorphism Phenotyping v2等算法预测其功能影响,可鉴定个体携带的潜在有害或致死隐性突变[14]。例如,在法国诺曼底牛中鉴定出一个与胚胎早期死亡相关的纯合缺失突变[15]。基于这些数据,保护工作者可制定科学配对方案,避免携带相同有害突变的个体交配,实现传统管理无法做到的精准干预。
此外,基于全基因组序列数据,利用成对序列马可夫共祖分析(Pairwise sequentially markovian coalescent, PSMC)等模型,可推断物种历史上有效种群大小的波动[16]。这有助于理解物种当前脆弱性的进化根源,比如是否经历冰川期挤压[17]。为确定哪些种群承载最独特或最丰富的遗传遗产并应列为优先保护对象,提供进化生物学依据。

1.2 多组学整合与适应性解析

基因组提供了生命的蓝图,而多组学整合则能动态揭示生物在特定环境下的运行状态。转录组学通过分析特定组织在应激条件(缺氧、高温和病原感染等)下的全基因表达谱,可鉴定关键差异表达基因与信号通路。例如,通过多组学研究牦牛的高原适应机制,不仅验证了HIF-1通路的核心作用,还发现了与能量代谢、血管生成相关的多个新候选基因,细致描绘了其低氧适应的分子网络[18]。代谢组学通过检测生物在特定生理状态下所有小分子代谢物的种类与数量,直接反映其生化状态与对外界刺激的响应。当濒危牛种面临食物短缺或寄生虫感染时,其血液或尿液代谢物谱会发生特征性变化。通过质谱等技术分析这些变化,可揭示其能量代谢、免疫应答等方面的生理耐受极限与调节机制[19]。宏基因组学将视角扩展至宿主与微生物组的互作关系,并且发现帕米尔盘羊肠道微生物群落的组成、结构和功能表现出显著的季节性变化,以适应冬季漫长的干旱期和食物短缺的压力[20]。同样适用于牛身上,可以通过宏基因组测序分析肠道菌群组成与功能,可评估种群在不同饮食条件下的营养健康状况,甚至发现与健康相关的益生菌类群,为人工辅助饲养提供精准营养干预方案。
通过整合转录组、代谢组、宏基因组等多组学数据,可从系统层面解析濒危牛种对特定病原、极端气候和特殊食物的适应性分子机制。这些信息对预测种群对未来气候变化的响应至关重要。例如,通过分析热休克蛋白家族基因等温度敏感基因的表达谱,可评估不同地理种群对热胁迫的敏感性[21]。基于这些分子层面的洞察,可科学指导“辅助迁居”决策,将具适应潜力的个体转移至更适宜的未来生境,而非固守其可能不再适应的历史分布区,从而提高种群在气候变化下的存续概率。

2 从保存到复壮的革命性技术工具

2.1 生殖工程技术的突破与应用

体细胞核移植技术在濒危物种保护中展现出其逆转时间的独特潜力。其核心价值在于能够利用保存的体细胞,如耳缘成纤维细胞,复活那些已经死亡但遗传上独一无二或具有关键遗传价值的个体。自2000年首例濒危物种印度野牛(Bos gaurus)克隆成功以来,该技术已在摩弗伦羊、欧洲盘羊等多种珍稀有蹄类动物中取得突破[22]。这项技术对于补充因个体意外死亡而损失的基因库,特别是挽救那些未能留下活体后代或生殖细胞的遗传关键个体,具有不可替代的作用。例如,使用一只于2000年死亡的野山羊在1999年采集的活检组织,通过SCNT技术获得了该灭绝物种的克隆个体[23]。其克隆个体虽出生后不久因肺部缺陷死亡,仍可证明该技术成功维持了种群遗传的多样性。
最新的进展把“可再生基因库”从概念推向现实,比如,建立野猪无转基因诱导多能干细胞以及应用SCNT产生活体后代,为野生动物建立“活体基因银行”提供范式[24]。与此同时,种间SCNT已在海拔3650 m的青藏高原实现犏牛原位克隆[25],证明该技术无需迁地即可在高海拔地区完成保种与扩繁,为极端环境畜牧资源保护开辟新径,这种原位保种的实现为其他濒危物种提供了一种模式借鉴。克隆濒危牛,比如西藏樟木牛和阿沛甲咂牛,并结合iPSCs与胚胎干细胞,可进一步展望多基因编辑、体外配子发生及地方优异性状挖掘等的未来应用[26]。
体外胚胎生产是提高雌性繁殖效率和利用雌性遗传资源的革命性技术。通过活体采卵(Ovum pick-up, OPU)技术,可反复从活体珍贵雌性个体中获取卵母细胞,极大提高其终身生殖贡献。更为关键的是,在个体死亡后可迅速采集卵巢组织,通过体外卵泡培养或卵母细胞体外成熟等技术抢救性获取生殖细胞。通过体外受精或胞浆内单精子注射产生胚胎,再移植至生理周期同步的受体母牛(通常为常见家牛品种)体内发育。该技术能高效、低成本地扩繁珍贵雌性个体,特别是那些自然繁殖率低或已丧失自然繁殖能力的个体,从而极大加速种群数量恢复。研究表明,成熟的“活体采卵-体外胚生产-胚胎移植”技术链条可使一头优良供体母牛的年产胚胎量提升数倍至数十倍[27],是突破自然繁殖限制的关键。在“OPU-体外胚生产-胚胎移植”链条中,单枚可用胚胎的生产成本主要包括活体采卵、体外受精、胚胎培养、检测及移植等环节的直接费用,具体受技术水准、用药方案、饲养管理及胚胎等级等因素影响。虽然单次生产成本较高,但该技术可大幅提升良种扩繁速度和遗传进展,通过高效生产优质胚胎,缩短世代间隔,降低长期育种成本。若胚胎移植成功率高、后代生产性能显著提升,则单胎摊销后的长期经济效益可观,尤其在规模化、高遗传价值畜群中应用具备经济可行性。
干细胞技术,特别是iPSCs技术,为濒危物种保护带来了近乎无限可能的远景。iPSCs可以通过将易于获取的体细胞,通过导入特定转录因子,如Oct4、Sox2、Klf4和cMyc,进行重编程而获得,具有类似胚胎干细胞的全能性。理论上,iPSCs可以分化为生物体的任何细胞类型,包括卵子和精子[28]。目前,虽然在濒危大型动物中尚未完全实现功能性配子的产生,但已在小鼠和人类中取得重要突破。科学家已能成功将小鼠iPSCs诱导分化为原始生殖细胞样细胞(Primordial germ cell-like cells, PGCLCs),并进一步在睾丸或卵巢环境中发育为有功能的配子,最终产生健康后代[29]。一旦此技术在牛科物种中成熟,它将彻底解决濒危物种生殖细胞来源匮乏的难题。建立iPSCs系,在液氮中永久保存,并可根据需要在体外制造精子和卵子,用于体外受精(In vitro fertilization, IVF)产生胚胎。这将使遗传资源的保存与利用极为灵活高效,真正实现从“细胞银行”到“活体个体”的闭环。

2.2 遗传编辑技术的审慎应用与伦理边界

基因组编辑技术以其便捷性和精准性,为直接干预濒危物种基因组提供了理论工具。未来可利用该技术精准修复种群中高发有害突变,或增强个体对特定致命疾病的抵抗力。
在保护实践中,其潜在应用主要有2个方向:一是修复,即利用同源定向修复(Homology directed repair, HDR)机制,将种群中高频发生的有害等位基因精准地修正为无害版本,从而降低遗传病负担[30]。二是引入,即在基因组的“安全港”位点引入特定的抗病等位基因。例如,在家牛中,研究人员已利用CRISPR技术成功敲入了与抗牛病毒性腹泻病毒和抗结核病相关的基因,培育出对这些疾病具有增强抵抗力的个体,为濒危牛种的类似干预提供了概念验证和技术路径参考[31,32]。此外,表观基因组编辑技术,如利用催化失活的dCas9融合DNA甲基化转移酶或去甲基化酶[33],可在不改变DNA一级序列的情况下,精准地调控特定基因的启动子活性,从而模拟对特定环境(如高温)的适应性基因表达状态,这为快速增强种群的环境适应力提供了另一种可能的技术路径。
然而,该技术潜力与伦理、政策及生态风险并存,必须在严格监管与共识下审慎探索。技术风险方面,脱靶效应可能导致非预期基因组改变,其长期影响难以评估;生态风险方面,基因编辑个体放归自然后,其引入基因型可能通过基因流渗入野生种群,对遗传完整性、适应性及生态系统结构产生不可预测的涟漪效应;伦理与治理方面,设计物种模糊了自然边界,引发人类干预自然进化进程的伦理争议。缺乏社区参与是主要的伦理与社会风险之一,当地牧民的接受度是技术能否真正落地并实现保护目标的社会基石。未来的政策与项目设计,必须将系统性、结构化的社区参与和惠益分享作为核心组成部分,而不仅仅是补充环节。此外,编辑生物的跨境转移、知识产权及全球治理框架目前仍处于空白或模糊地带[34]。全球对濒危物种基因编辑的监管,正从单纯的技术安全评估,转向更包容技术伦理与社会接受的综合治理。未来的政策制定需更重视社区视角:欧盟的严格监管需增加社区咨询的灵活性;美国的产品导向模式应纳入社会影响评估;中国的中间路径可探索将社区传统知识作为特殊考量因素。最终,构建一个既确保生物安全,又尊重社区权益、促进公平惠益分享的全球治理框架,是技术向善发展的关键。
目前基因编辑更应视为需深入基础研究、技术优化与广泛社会讨论的未来工具,而非当前常规保护手段。任何野外释放尝试都必须经过极其严谨的风险评估与公开透明的决策程序。

3 构建可复制、可推广的保护体系

单一技术的突破不足以应对复杂的保护挑战,而将以细胞库、基因组信息库、智能监测网络与技术示范中心为核心形成的系统方案,可以将各项技术系统性地整合到一个协同运作、可复制推广的保护体系中,如图1所示。
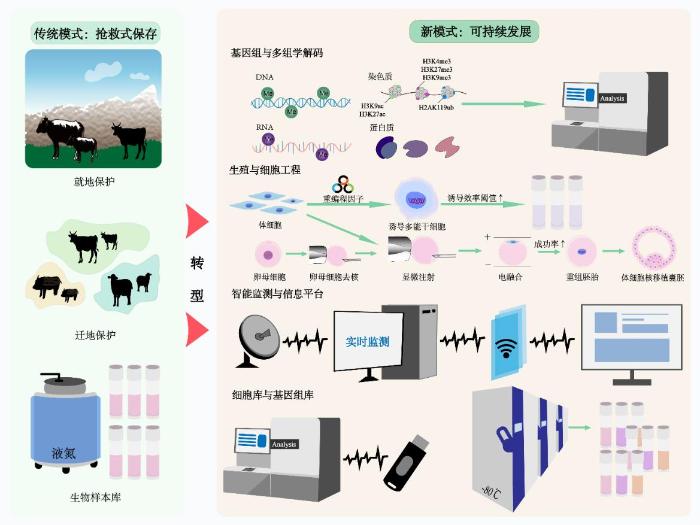
图1 濒危牛种质资源保护的技术融合与范式重构

注:图片使用Adobe Illustrator绘制。

Fig. 1 Technological integration and paradigm reconstruction for the conservation of endangered cattle germplasm resources

Note: The figure was created using Adobe Illustrator.

3.1 原位监测体系

利用卫星遥感获取大尺度栖息地变化数据;无人机航拍实现高分辨率种群普查与个体识别;地面部署生物声学传感器、相机陷阱与物联网设备,收集精细化行为与生理数据[11]。这些多源数据通过物联网传输,并借助人工智能算法进行自动分析,可以实现种群数量实时统计、个体健康评估、盗猎预警以及栖息地质量的动态评价[10,35],为保护管理提供前所未有的精准决策支持。

3.2 细胞库与基因组信息库

系统性建立濒危牛种“细胞银行”,按照国际生物样本库标准(如ISBER最佳实践),冷冻保存来自不同地理种群与遗传谱系的成纤维细胞和iPSCs等。这些细胞库是进行SCNT和iPSCs诱导等技术操作的原材料库,是实现遗传资源长期保存与未来复活的根本保障[36,37]。与之并行,必须建立公开、共享的基因组信息库,汇集全基因组、转录组等数据。这不仅可促进全球合作,还能通过生物信息学挖掘持续产生新的保护见解。两者结合,构成保护范式的数字-物理双核心[38],确保遗传信息在湿实验与干分析层面均得到永久保存与充分利用。

3.3 技术示范中心与野外回归

在具有代表性的濒危牛种分布区,建立集技术研发、应用示范、人才培训于一体的保护技术示范中心。这些中心在保护育种与重引入中扮演关键角色,负责核心技术的本地化适配、优化与成本控制,并系统化培训一线保护人员掌握活体采卵、胚胎移植、样本采集与保存等核心技能,成为技术推广的孵化器与人才摇篮[39,40]。最终,通过科学野外回归程序,将人工繁育或辅助生殖技术产生的个体放归自然。这包括严格预适应训练、健康状况筛查,以及释放后长期追踪监测(如通过卫星颈圈和无人机巡护)。监测数据用于评估回归个体的存活率、繁殖成功、行为适应及其对野生种群的遗传贡献,形成“干预-监测-评估-调整”的适应性管理闭环[41]。

4 总结与展望

4.1 核心挑战与政策建议

基因组测序、生殖克隆等技术对大多数发展中国家与保护区而言仍显高昂。推动技术标准化、自动化与开源化,是降低成本、促进普及的关键[42]。跨学科人才短缺方面,亟须培养既精通分子生物学、生物信息学,又深刻理解保护生物学、生态学与社区工作的复合型人才。国际法律、政策与伦理协调方面,亟须建立全球治理框架,以应对基因编辑生物体跨境转移、数字序列信息惠益分享及“去灭绝”等新兴议题带来的法律与伦理挑战[43]。同时,需通过生态补偿、绿色金融等机制创新,为保护工作提供可持续资金支持。
面对日益严峻的生物多样性危机,依赖传统方法的单一保护模式已难以为继。本文系统论证了通过深度融合基因组学、生殖工程、基因编辑、信息技术与智能生态监测等前沿科技,构建技术融合式保护新范式的必要性与可行性。这一范式旨在将保护行动从被动、侧重于数量恢复的“抢救式保存”,升级为主动、旨在恢复种群长期活力与进化潜力的“可持续恢复”。通过构建以细胞银行、基因组信息库、智能监测网络与技术示范中心为核心的可复制、可推广系统方案,不仅能更有效地守护濒危牛种这份珍贵的自然与文化遗产,更能在此过程中为应对全球生物多样性丧失挑战,贡献不可或缺的中国智慧、中国技术与中国方案。

4.2 未来技术展望

新兴技术将重塑濒危物种保护格局。首先,人工智能与大数据建模的应用将超越监测范畴。人工智能可整合基因组、环境、气候及实时监测等海量多源数据,构建复杂种群动态预测与疾病传播风险模型[44],实现保护干预的智能决策、前瞻预警与情景模拟,使管理更加智能化与预见性。其次,类器官技术可利用iPSCs或成体干细胞在体外培育微型简化器官结构。这将极大促进对濒危牛种特有疾病机理的研究、药物与疫苗筛选与毒性测试,而无需频繁打扰或牺牲珍贵野生个体[42],是通向精准兽医学的桥梁。最后,合成生物学可能为从头合成或修复超长DNA片段、乃至构建人工染色体以向遗传多样性极度匮乏的种群补充新遗传变异提供理论与技术基础[45],虽仍属前瞻探索,但潜力巨大。
[1]
RIPPLE W J, WOLF C, NEWSOME T M, et al. Extinction risk is most acute for the world’s largest and smallest vertebrates[J]. Proceedings of the National Academy of Sciences of the United States of America, 2017, 114(40): 10678-10683.

[2]
张建军, 李俊生, 吴军, 等. 中国生物多样性保护进展与转型策略[J]. 生物多样性, 2023, 31(9): 106-118.

ZHANG J J, LI J S, WU J, et al. Progress and Transformation Strategies in Biodiversity Conservation in China[J]. Biodiversity, 2023, 31(9): 106-118.

[3]
KARDOS M, ARMSTRONG E E, FITZPATRICK S W, et al. The crucial role of genome-wide genetic variation in conservation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(48): e2104642118.

[4]
DÍAZ S, SETTELE J, BRONDÍZIO E S, et al. The IPBES Global Assessment Report on Biodiversity and Ecosystem Services: Summary for Policymakers[R]. Bonn: IPBES, 2019.

[5]
SUPPLE M A, SHAPIRO B. Conservation of biodiversity in the genomics era[J]. Genome Biology, 2018, 19(1): 131.

[6]
FENG S H, FANG Q, BARNETT R, et al. The genomic footprints of the fall and recovery of the crested Ibis [J]. Current Biology, 2019, 29(2): 340-349.e7.

[7]
VAN DER VALK T, DÍEZ-DEL-MOLINO D, MARQUES-BONET T, et al. Historical genomes reveal the genomic consequences of recent population decline in eastern gorillas[J]. Current Biology, 2019, 29(1): 165-170.e6.

[8]
SARAGUSTY J, LOI P. Towards the application of assisted reproductive technologies in endangered mammals: Challenges and prospects[J]. Theriogenology Wild, 2022, 1: 100004.

[9]
COMIZZOLI P, HOLT W V. Breakthroughs and new horizons in reproductive biology of rare and endangered animal species[J]. Biology of Reproduction, 2019, 101(3): 514-525.

[10]
TUIA D, KELLENBERGER B, BEERY S, et al. Perspectives in machine learning for wildlife conservation[J]. Nature Communications, 2022, 13: 792.

[11]
IVOŠEVIĆ B, HAN Y G, CHO Y, et al. The use of conservation drones in ecology and wildlife research[J]. Journal of Ecology and Environment, 2015, 38(1): 113-118.[12] KARDOSM, ÅKESSONM, FOUNTAINT, et al. Genomic consequences of intensive inbreeding in an isolated wolf population[J]. Nature Ecology & Evolution, 2018, 2(1): 124-131.

[13]
MACHOVÁ K, ŠTRUNCOVÁ P, CALTA J, et al. Genealogical analysis of European Bison population revealed a growing up population despite very low genetic diversity[J]. PLoS One, 2022, 17(11): e0277456.

[14]
ROBINSON J A, ORTEGA-DEL VECCHYO D, FAN Z X, et al. Genomic flatlining in the endangered island fox[J]. Current Biology, 2016, 26(9): 1183-1189.

[15]
MESBAH-UDDIN M, HOZE C, MICHOT P, et al. A missense mutation (p.Tyr452Cys) in the CAD gene compromises reproductive success in French Normande cattle[J]. Journal of Dairy Science, 2019, 102(7): 6340-6356.

[16]
LI H, DURBIN R. Inference of human population history from individual whole-genome sequences[J]. Nature, 2011, 475(7357): 493-496.

[17]
EXCOFFIER L, DUPANLOUP I, HUERTA-SÁNCHEZ E, et al. Robust demographic inference from genomic and SNP data[J]. PLoS Genetics, 2013, 9(10): e1003905.

[18]
STORZ J F. High-altitude adaptation: mechanistic insights from integrated genomics and physiology[J]. Molecular Biology and Evolution, 2021, 38(7): 2677-2691.

[19]
POTTS R W A, GUTIERREZ A P, PENALOZA C S, et al. Potential of genomic technologies to improve disease resistance in molluscan aquaculture[J]. Philosophical Transactions of the Royal Society of London Series B, Biological Sciences, 2021, 376(1825): 20200168.

[20]
马艳林, 倪华, 黄翔辉, 等. 不同季节帕米尔盘羊肠道微生物群落结构解析[J]. 生态学报, 2025, 45(12): 6056-6066.

MA Y L, NI H, HUANG X H, et al. Analysis of the gut microbiota community structure of Ovis ammon polii in different seasons[J]. Acta Ecologica Sinica, 2025, 45(12): 6056-6066.

[21]
YER E N, BALOGLU M C, AYAN S. Identification and expression profiling of all Hsp family member genes under salinity stress in different poplar clones[J]. Gene, 2018, 678: 324-336.

[22]
LANZA R P, CIBELLI J B, DIAZ F, et al. Cloning of an endangered species (Bos gaurus) using interspecies nuclear transfer[J]. Cloning, 2000, 2(2): 79-90.

[23]
FOLCH J, COCERO M J, CHESNÉ P, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica Pyrenaica) by cloning[J]. Theriogenology, 2009, 71(6): 1026-1034.

[24]
GAO C, ZHOU X Y, GU S G, et al. Establishment of interspecies somatic cell nuclear transfer and transgene-free inducible pluripotent stem cells for versatile conservation of the germplasm resource of wild boar[J]. Animal Research and One Health, 2025.

[25]
YU DW, NIMA QZ, CAO L, et al. Hybrid yak-cattle in situ conservation via interspecies somatic cell nuclear transfer at ultra-high-altitude region. bioRxiv. 2025

[26]
齐浩南, 霍浩楠, 曹磊, 等. 体细胞核移植克隆西藏濒危樟木牛[J]. 中国畜牧兽医, 2025, 52(12): 5740-5748.

QI H N, HUO H N, CAO L, et al. Cloning of the endangered Zhangmu cattle via somatic cell nuclear transfer in Xizang[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(12): 5740-5748.

[27]
MERTON J S, DE ROOS A P W, MULLAART E, et al. Factors affecting oocyte quality and quantity in commercial application of embryo technologies in the cattle breeding industry[J]. Theriogenology, 2003, 59(2): 651-674.

[28]
TAKAHASHI K, YAMANAKA S. Induction of pluripotent stem cells from mouse embryonic and adult fibroblast cultures by defined factors[J]. Cell, 2006, 126(4): 663-676.

[29]
HAYASHI K, OGUSHI S, KURIMOTO K, et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice[J]. Science, 2012, 338(6109): 971-975.

HAYASHI K, OGUSHI S, KURIMOTO K, et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice[J]. Science, 2012, 338(6109): 971-975.

[30]
GYIMESI M, KOVÁCS A, VARGA E, et al. CRISPR/Cas9-mediated gene correction of a dominant mutation in a bovine model of hereditary tyrosinemia type 1[J]. Scientific Reports, 2022, 12(1): 112.

[31]
GAO Y P, WU H B, WANG Y S, et al. Single Cas9 nickase induced generation of NRAMP1 knockin cattle with reduced off-target effects[J]. Genome Biology, 2017, 18(1): 13.

[32]
ARAVINDH S, SILPA M V, VOGGU S P, et al. Epigenetic mechanisms associated with livestock adaptation to heat stress[J]. Biology, 2025, 14(9): 1154.

[33]
THAKORE P I, D’IPPOLITO A M, SONG L Y, et al. Highly specific epigenome editing by CRISPR-Cas9 repressors for silencing of distal regulatory elements[J]. Nature Methods, 2015, 12(12): 1143-1149.

[34]
REDFORD K H, ADAMS W, MACE G M. Synthetic biology and conservation of nature: wicked problems and wicked solutions[J]. PLoS Biology, 2013, 11(4): e1001530.

[35]
SATHIYA A, ANGEL D, ISWARYA M, et al. IoT enabled healthcare framework using edge AI and advanced wearable sensors for real time health monitoring[C]. //2025 International Conference on Multi-Agent Systems for Collaborative Intelligence (ICMSCI). January 20-22, 2025, Erode, India. IEEE, 2025: 384-392.

[36]
SARAGUSTY J, DIECKE S, DRUKKER M, et al. Rewinding the process of mammalian extinction[J]. Zoo Biology, 2016, 35(4): 280-292.

[37]
EKBLOM R, BRECHLIN B, PERSSON J, et al. Genome sequencing and conservation genomics in the Scandinavian wolverine population[J]. Conservation Biology, 2018, 32(6): 1301-1312.

[38]
LEWIN H A, RICHARDS S, LIEBERMAN AIDEN E, et al. The Earth BioGenome Project 2024: Expanding genomic resources for global biodiversity conservation and sustainable development[J]. Proceedings of the National Academy of Sciences, 2024, 121(25): e2400953121.

[39]
LACHER T E, BUTCHART S H M, GUMBS R, et al. The status, threats and conservation of Critically Endangered species[J]. Nature Reviews Biodiversity, 2025, 1(7): 421-438.

[40]
SPEAKER T, O'DONNELL S, WITTEMYER G, et al. A global community-sourced assessment of the state of conservation technology[J]. Conservation Biology, 2022, 36(3): e13871.

[41]
BERGER-TAL O, BLUMSTEIN D T, SWAISGOOD R R. Conservation translocations: a review of common difficulties and promising directions[J]. Animal Conservation, 2020, 23(2): 121-131.

[42]
YAO Q G, CHENG S, PAN Q L, et al. Organoids: development and applications in disease models, drug discovery, precision medicine, and regenerative medicine[J]. MedComm, 2024, 5(10): e735.

[43]
AKPOVIRI F I, BAHARUM S N, ZAINOL Z A. Digital sequence information and the access and benefit-sharing obligation of the convention on biological diversity[J]. NanoEthics, 2023, 17(1): 1.

[44]
CAMPS-VALLS G, FERNÁNDEZ-TORRES M Á, COHRS K H, et al. Artificial intelligence for modeling and understanding extreme weather and climate events[J]. Nature Communications, 2025, 16: 1919.

[45]
KOHL P A, BROSSARD D, SCHEUFELE D A, et al. Public views about editing genes in wildlife for conservation[J]. Conservation Biology, 2019, 33(6): 1286-1295.

Outlines

/

〈 〉