v
Regulation of Embryonic Development and Stem Cell Differentiation

Advances in the regulation of lineage differentiation in early livestock embryos

  • Yu Shi ,
  • Liang Zhu ,
  • Sihan Ju ,
  • Zhonghua Liu ,
  • Xiaogang Weng
Expand
  • College of Life Sciences, Northeast Agricultural University, Harbin, 150030, Hei Longjiang

Received date: 2026-01-04

  Online published: 2026-09-10

Abstract

The lineage specification events during early mammalian embryogenesis are crucial for the formation of the embryo proper and extraembryonic tissues, including trophoblast. These progress are orchestrated through the coordinated interplay of signaling pathways, transcription factors, metabolic activities, and epigenetic regulation. Although significant insight has been gained from studies on mice, the specific molecular mechanisms involved in lineage specification differ between livestock and mouse embryos. The establishment of cellular heterogeneity, the modes of lineage gene interactions, and the timing of differentiation are not uniform across species. While the dynamic regulation of energy metabolism and epigenetic modifications are highly conserved, the timing and frequency of these processes vary among different mammalian species. In contrast to mice, ungulate species exhibit a more permissive fate determination pattern during early embryogensis. This review systematically compares the mechanisms of early embryonic lineage specification between livestock and mice, providing the reference for optimizing in vitro culture systems for livestock embryos and establishing embryonic stem cell lines representing distinct pluripotent states.

Cite this article

Yu Shi , Liang Zhu , Sihan Ju , Zhonghua Liu , Xiaogang Weng . Advances in the regulation of lineage differentiation in early livestock embryos[J]. The Chinese Livestock and Poultry Breeding, 2026 , 22(9) : 113 -120 . DOI: 10.19543/j.cnki.1673-4556.20260805.001

哺乳动物受精卵在经历数次卵裂后会退出全能性并形成内细胞团(Inner cell mass, ICM)与滋养外胚层(Trophectoderm, TE),随后ICM进一步分化形成上胚层(Epiblast, EPI)与原始内胚层(Primitive endoderm, PrE;又称下胚层Hypoblast, HYPO),这两次谱系的正确分化是后续胚胎植入和正常发育的前提。哺乳动物胚胎的早期谱系分化总体上由保守的信号通路HIPPO与FGF/ERK及转录因子OCT4、NANOG与GATA6等主导[1-14],且均存在表观修饰的重建及代谢方式的转变,但其涉及的具体作用过程并不保守。为了更为深入地解析家畜早期胚胎发育过程中的谱系分化机制,并为家畜多能性胚胎干细胞建系及体外胚胎高效发育体系的建立提供帮助,本文从转录因子、信号通路、表观修饰及能量代谢等角度综述小鼠及家畜(以牛、猪、羊为例)早期胚胎发育过程中细胞谱系分化的调控机制。

1 着床前胚胎发育

哺乳动物早期胚胎发育会经历一系列重要的生物学事件,包括合子基因组激活(Zygotic genome activation,ZGA)、致密化与极化、囊胚形成及伴随的谱系分化等。ZGA发生于受精后早期卵裂阶段(小鼠主要在2~4细胞期,其他哺乳动物多在4~8细胞期),由先锋转录因子DUX、NR5A2、KLF4与ESRRB等驱动[15-18],标志着胚胎对自身发育程序的接管。随后在约16细胞期,卵裂球发生致密化并逐渐建立细胞极性,细胞间连接增强,开始形成桑葚胚。伴随外层细胞极化及离子转运体系的建立,胚胎空腔化形成囊胚结构,产生空间上分离的两类细胞群:内侧细胞形成内细胞团(Inner cell mass,ICM),外层细胞形成滋养层(Trophectoderm,TE),即第一次谱系分化[1-2,19-22]。随着囊胚进一步扩张并孵出透明带,发生第二次谱系分化,ICM分化为上胚层与下胚层(原始内胚层)[3-4];在此阶段,猪、牛和羊等家畜滋养层在维持囊胚结构的同时,开始启动伸长相关信号及分子活动,为后续着床准备[23-25]。最终,上胚层进一步分化为内、中、外三胚层,构成胚胎本体;由下胚层发育来的卵黄囊与滋养层共同形成胎盘前体。

2 早期谱系分化相关转录因子及信号通路

2.1 小鼠

在小鼠的早期胚胎发育过程中,受精卵激活的合子基因组诱导核受体转录因子(Nuclear receptor transcription factors, NR TFs):NR5A2、ESRRB等的表达,直接激活Nanog、Oct4、Tdgf1等基因的表达,进一步将ZGA与第一次命运决定相关联[16,18]。随后发生致密化胚胎的外周细胞(新生滋养层, nascent TE)TFAP2C、TEAD4、RHOA等蛋白的积累诱导其本身极化产生顶端与基底侧区域,为未来特化为滋养层做准备[19-20]。而胚胎外周细胞顶端区域表达的AMOT调控其产生相较于内部细胞不同的HIPPO与NOTCH信号活动,起始滋养层命运[11]。滋养层细胞中未磷酸化的AMOT不会与NF2和LATS1/2组成复合体,这使得未磷酸化的YAP1在保持核定位的同时也能与TEAD结合以维持CDX2并抑制SOX2的表达[12,26-29],此时NOTCH信号同样被激活以增强CDX2的表达;在胚胎内部未极化的细胞中,磷酸化AMOT后形成的复合体进一步磷酸化YAP1,使其从核中被移除,以解除对SOX2的表达抑制,促使滋养层与内细胞团的分离[11-12];而早期表达SOX2的这一群细胞未来倾向于上胚层的分化命运[13];此外,SOX2调控Fgf4的起始表达,为下胚层相关基因表达做准备[30],但此时表达的Fgf4对Gata6及Nanog不具有调控作用[31]。值得注意的是,SOX2的表达是诱导还是维持内细胞团/上胚层命运发生的因素仍然不能确定[13,32]。当胚胎发育至致密化晚期,细胞逐渐进入第一次命运决定的阶段:全能性卵裂球逐步发生分化,多能性内细胞团与滋养层形成,原本卵裂球内共表达的OCT4、CDX2逐渐呈现出相互抑制的表达模式[1-2,21-22]。
当内细胞团进入第二次命运决定阶段,NANOG和GATA6的表达被限制在不同细胞中,进一步发育为上胚层或原始内胚层[3-4]。在小鼠中,来自上胚层受NANOG调控表达的FGF4经旁分泌与FGFR2结合后,激活ERK信号诱导原始内胚层命运[13-14,33-34]。尽管囊胚期大多数卵裂球维持较高的ERK活性,但也有部分细胞呈现脉冲式激活ERK活性的特征。随着有丝分裂启动,ERK活性整体升高;而在有丝分裂退出后,子代细胞的ERK活性出现差异:部分持续保持高活性,部分短暂失活后再度恢复活性。这一差异直接影响细胞中GATA6与NANOG的表达占比,驱使其发育命运的走向产生差异[35]。在此过程中,p38-MAPK14/11同样能够被FGFR激活的Tak1或Mkk6间接激活[34,36]。此时下胚层中GATA6、GATA4、PDGFRα与SOX17等的表达升高,而NANOG的表达被抑制以进一步响应FGF信号,最终在FGF/ERK的差异作用下促使上下胚层分离[12,31]。值得注意的是,上下胚层分化早期NANOG表达的动态变化只会导致命运偏倚而非命运决定[13,33]。此外,BMP信号也参与胚外谱系的形成[37-38]。

2.2 家畜

在其他哺乳动物中,谱系基因并不总是拮抗并被限制在特定细胞类群中表达。在人、猪、牛和兔的胚胎中,OCT4的表达并不被局限于甚至晚期扩张囊胚的内细胞团中,其转录产物和蛋白在滋养层细胞中同样有表达,CDX2与OCT4的表达也并不总是互斥的[5-10]。猪、牛、羊之间的早期胚胎发育过程较为相似[23-25]。猪、牛与羊早期胚胎的第一次命运决定均在桑葚胚晚期开始,此时就已经存在两群异质性表达PDGFRA(pre-ICM)与DAB2(pre-TE)的细胞群[23-24]。牛胚第一次命运决定可能由GATA3而非CDX2起始[9,23,28]。在牛早期囊胚内细胞团中就已存在OCT4、NANOG的表达上调;而CDX2的表达水平较低,其降低虽阻碍滋养层细胞增殖但不会阻滞囊胚孵出,其滋养层命运的维持也并不需要抑制OCT4的表达。这是因为在牛、人与兔胚中的OCT4不具有同mOct4一样的TCFAP2结合位点,无法实现CDX2依赖的对OCT4的抑制作用[9]。但是,不同于鼠,牛早期胚胎中OCT4对于NANOG与GATA6等基因的表达、多能性的维持与上胚层的形成是必需的[39-40]。随着发育进程推进,牛胚胎上胚层中TGFβ/SMADs、FGF/ERK信号活跃,相关蛋白持续表达且抑制JAK/STAT,WNT/β-catenin信号的活动[23],尽管MEK信号相关蛋白表达水平的扰动会使得牛胚内细胞团中GATA6/NANOG阳性细胞比例失衡,但不会发生同小鼠一般彻底的细胞类型转换,这也暗示牛胚中GATA6的表达可能不仅依赖于MAPK信号;此外牛胚胎中FGF信号虽然既不起始也不调控GATA6表达,但也能够促进下胚层的发育甚至完全转换细胞类型[41]。这种非典型的FGF信号活动与小鼠差异较大,而与人更为相似[40]。
在猪的E6早期囊胚中,SOX2、NANOG、OCT4乃至GATA6等基因均在内细胞团中有较高表达水平[5,24]。CDX2的缺失虽不影响其致密化的发生,但会造成PKCα、p-EZRIN、BMP4等蛋白表达的降低,最终导致囊胚时期滋养层细胞极化异常以及囊胚孵出的失败;滋养层与内细胞团细胞数目的比例失衡[42]。在E7晚期囊胚不同的细胞群中,谱系基因呈现异质性表达并形成上下胚层;在此期间,naive多能性相关基因的表达及JAK/STAT3活性被迅速遏制[24];Activin/Nodal与FGF相关蛋白在上下胚层形成及后续的发育过程中呈现高表达。FGF信号会增强下胚层命运的分化导向;而其活性降低虽然导致猪胚内细胞团数目的减少但不影响NANOG与GATA4阳性细胞的比例[24,43]。尽管抑制MEK信号会降低GATA4的表达,但既不影响内细胞团的形成也不能完全阻止下胚层的分化,暗示此阶段FGF信号的作用并非主要通过激活MEK来实现。也有文献报道此期间有p38-MAPK、PI3K-Akt信号的活动以及对WNT/β-catenin通路的抑制,这些信号的异常会导致细胞数目的异常及下胚层分化障碍[5,10,24]。
绵羊胚胎第一次谱系分化同样起始于桑椹胚晚期,虽不如猪、牛胚细胞群异质性明显,但也有部分细胞异质性表达SOX2、PDGFRA与DAB2、GATA3;且OCT4在所有细胞中均有表达。在E7囊胚的内细胞团中,已经有一小群细胞异质性表达GATA6、GATA4、SOX17和NANOG,表明在此阶段第二次谱系分化可能已经开始,其具体发育进程与猪牛类似[25]。此外,在绵羊的着床前胚胎发育过程中,FGF信号活动的增加能够使得内细胞团中GATA4表达上调并抑制NANOG的表达但不影响囊胚时期细胞数目[44]。
比较小鼠与家畜早期胚胎发育过程中涉及的关键转录因子与信号通路可以看出,家畜胚胎早期发育命运格局更为宽松,FGF信号等的波动并不会导致谱系基因表达、细胞数目、胚层分化等的全部异常,表明在家畜中命运核心调控信号的后续作用层级及调控关系可能更为复杂。而相较于其他哺乳动物,小鼠所呈现的更为特殊的谱系分化机制:命运拮抗基因的互斥表达,可能允许其谱系命运被更快地推进以完成发育进程。家畜与小鼠早期胚胎谱系分化转录因子及信号通路的比较见图1。
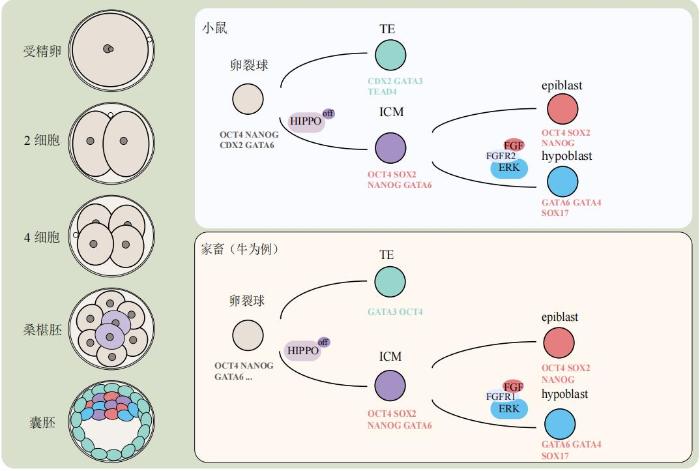
图1 家畜与小鼠早期胚胎谱系分化转录因子及信号通路的比较

Fig. 1 Comparison of transcription factors and signaling pathways involved in early lineage differentiation in mouse and livestock embryos

需要注意的是,尽管谱系分化相关转录因子及信号活动在小鼠与家畜早期胚胎发育过程中发挥着重要作用,但也有许多其他需要考虑的影响因素。胚胎中母源基因的表达同样有可能干扰相关基因对胚胎命运影响的探究;母体与胚胎组织间包括机械力、分子通讯等众多因素的相互作用形成的复杂时空互作;胚胎所处液体环境与离子交换运输等也是在探究胚胎发育进程影响机制所不容忽略的影响因素。体外培养胚胎的实际发育情况可能存在相较于体内滞后及胚层分化紊乱等情况,其代谢活动等也有所差异,而这会影响关键命运决定基因的筛选与对胚胎内实际代谢、表观修饰、信号作用等活动的探究,选用体内胚胎虽然能够在一定程度上避免这类问题,但其可操作性和成本也需要被考虑在内。

3 表观修饰、能量代谢与早期谱系分化

3.1 表观调控

3.1.1 小鼠

早期谱系分化是一个复杂、精密的调控过程,除相关转录因子与信号通路,也需要表观修饰的参与[45]。在小鼠胚胎中,DNA甲基化水平呈现活跃的动态变化。在受精之后原核融合完成前,除印迹基因的种系差异甲基化区域(Differentially methylated regions,DMRs)外,父源的甲基化在Tet家族成员催化形成的羟甲基化中间体等的作用下被高效精确的擦除,降至同母源CpGs位点一样的较低或未甲基化水平[46-48]。在着床前胚胎发育过程中,胚胎整体的甲基化水平都处于被动降低的状态,随着两次谱系分化与原肠运动的完成,胚胎基因组于内细胞团形成开始后发生由Dnmt3A/B催化的全局再甲基化,这使得内细胞团内的DNA甲基化水平再次升高,而滋养层中仍保持着相对的低甲基化状态[49]。在此期间,甲基化的缺失会导致基因的异位表达,但也存在能够逃逸甲基化重编程的非印记基因[47-48]。而一些基因如OCT4、NANOG及RHOX只有在经历甲基化后才能实现正确的时空特异表达[50-51]。值得注意的是,上胚层谱系相关基因启动子区域的甲基化却在其终末分化的细胞类型中(如造血和神经系统谱系中)被擦除,这表明可逆的甲基化修饰或许能够限制谱系分化基因的过早表达[47]。
除DNA甲基化外,真核生物还能够通过组蛋白修饰改变染色质结构,进而达到抑制/促进基因表达、维持胚胎发育过程正常的目的。由保守的多梳蛋白(Polycomb group proteins,PcG)构成的染色质修饰复合体:PRC1能够催化H2A的Lys119单泛素化(H2AK119Ub),使染色质异固缩;PRC2能够催化H3的Lys27甲基化(H3K27me1/2/3)。PRC1/2定位在基因组上与发育相关的转录因子启动子上,使其仅表达在特定细胞类型中[52]。在小鼠的卵母细胞与着床前胚胎中,H3K27me3修饰在父母源基因组的启动子位置均被擦除,但广泛分布于低DNA甲基化、低转录活动的基因间区且在内细胞团及之前的早期发育阶段呈现特殊的宽峰状态,在此期间H3K4me3先于H3K27me3在转录活跃基因的启动子区域迅速建立广域修饰;随后在上胚层中H3K27me3开始重建;直至着床后回归经典的修饰状态,与H3K4me3一起以共价形式富集于发育相关基因的启动子区域[53-55]。
在发育过程中,尽管H3K27me3与DNA甲基化呈现负相关性,但二者并非拮抗关系,H3K27me3在基因组上的广泛分布使得除CpG岛以外的许多DNA甲基化区域被覆盖[56]。H2AK119Ub1在卵母细胞与早期胚胎中具有与H3K27me3类似的广泛的宽峰修饰状态,但与H3K27me3的重叠分布区域在2细胞到桑椹胚时期却十分有限,反而与开放性修饰H3K36me3的分布高度重合,直至在着床后的胚胎中才再次与H3K27me3呈现共分布[54]。受精过程中H3K9me3依赖的异染色质发生的剧烈重编程同样致使启动子区域的H3K9me3修饰被清除,而重新建立的H3K9me3进一步增强了父母源特异修饰区域与等位基因间的不对称修饰,直至第一次谱系分化后开始重新趋近平衡[57]。以上组蛋白修饰在谱系分化过程中建立细胞命运的屏障,抑制谱系不相关基因及其转录因子的激活,甚至预先决定了细胞命运[57-58]。

3.1.2 家畜

与小鼠不同,猪牛卵母细胞基因组上非转录区域同样呈现广泛的高甲基化水平并伴随H3K36me2/3、H3K27me3或H3K27ac修饰,表明转录依赖性甲基化并非哺乳动物卵母细胞甲基化的绝对必要条件,但其具体的作用机制仍不清楚[59-60]。此外,猪与牛胚胎中特殊存在的CGCs(CpG continents)能够富集H3K4me3与H3K27me3修饰以对抗DNA甲基化,并与非CGCs区域的拮抗性修饰H3K36me2/3共同限制了PRC2的过度招募,这可能与父源印记的维持相关[56,59,61]。尽管在受精后甲基化水平降低,但卵母细胞样甲基化模式在牛胚胎卵裂直至囊胚阶段仍然持续存在,并在囊胚阶段开始恢复;而猪囊胚在此阶段却呈现高度低甲基化状态[62]。受精后,随着发育进程猪牛胚胎中H3K27me3与H3K4me3的修饰水平大幅降低,直至囊胚阶段才大规模或完全恢复[59]。牛与人胚胎在合子基因组激活过程中具有更为类似的染色质可及性与转录调控因子作用[63],牛卵母细胞及合子基因组激活前胚胎的基因体普遍被H3K9me3标记并与PRC2催化的H3K27me3等共同抑制RNA聚合酶活性,为谱系基因未来表达做准备,在小鼠与人卵母细胞中同样存在类似的修饰情况[57,59-60,64];而在牛胚胎第一次谱系分化后OCT4在TE与ICM中的广泛表达所呈现的发育命运可塑性,也与由作为兼容性异染色质标志物的H3K27me3驱动形成的表观遗传抑制相关[65]。
在猪胚胎4细胞期到囊胚阶段,KDM6A/KDM5B的正常表达在维持H3K27me3与H3K4me3修饰平衡的过程中发挥着关键作用,能够阻止谱系基因如HOX等的提前表达[66];KDM5B/KDM5C在维持H3K4与H3K9多种甲基化修饰水平正常,合子基因组激活等过程中同样发挥重要作用[67]。猪牛等哺乳动物胚胎着床前发育规程中保守存在的甲基化模式与组蛋白修饰的表观重编程,伴随染色质三维结构的改变并招募先锋转录因子,共同协助具有发育全能性的受精卵在囊胚阶段转为多能性与第一次谱系分化同步完成,促使谱系基因分化相关基因正确地进行时空特异性表达;重新设定胚胎的表观遗传图谱,改变染色质开放性,也有助于合子基因组的激活;同样也有助于维持印记稳定存在并保持活跃状态[59-60,62,66,68-70]。由此可见,在不同的哺乳动物中表观调控时序、频率、修饰分布与修饰位点等存在多种差异,需要谨慎对待跨物种的表观调控比较[59-60,68,71-72]。

3.2 能量代谢

在早期胚胎发育过程中,代谢产物同样能够影响细胞命运走向,而谱系分化所形成的不同命运细胞群,其代谢方式也存在较大差异。细胞代谢产物能够协调信号作用间接调控基因表达[73]。在小鼠胚胎中,尽管致密化的桑椹胚无法利用葡萄糖进行ATP、氨基酸、脂肪酸与碱基合成,但其衍生的代谢产物同样参与第一次谱系分化的调控中。葡萄糖通过己糖胺合成途径产生的代谢产物葡萄糖胺GlcN促使YAP1定位于细胞核;通过磷酸戊糖途径合成的核苷酸与鞘脂类信号(Sphingolipid,S1P)共激活mTOR信号后促使TFAP2C的翻译,最终这些互作的代谢途径共同影响滋养层分化[74]。此外,内细胞团相较于滋养层处于更为静息的代谢状态。
滋养层具有更多的线粒体分布和氨基酸周转率,耗氧能力强且能够产生更多ATP[75]。在两次谱系分化期间,胚胎的能量代谢方式迅速地发生改变。在兔胚中,内细胞与滋养层相较于上胚层,具有更强的核及线粒体编码基因表达水平,意味着活跃的氧化磷酸化代谢方式;随后经过第二次谱系分化,转为糖酵解作为能量的主要供应方式,而其相关基因在第一次谱系分化早期就已开始逐渐表达,为能量代谢方式的转换做准备[72]。哺乳动物胚胎谱系分化过程中保守地存在这种能量代谢方式的转变,但其具体的发生时序与分子作用机制等不尽相同,如牛胚具有更长的中间代谢状态[23,25,76]。相较于小鼠,猪与牛卵母细胞及胚胎中含有丰富的脂质,而一些脂肪酸能够作为猪与牛胚胎脂质储存来源以支持囊胚形成及孵出,脂肪酸代谢的异常会造成AKT-p53信号活动的异常,抑制OCT4的表达与磷酸化并诱发凋亡[77-78]。
此外,代谢产物及酶也会影响胚胎的表观修饰调控。经甲硫氨酸代谢产生的S-腺苷甲硫氨酸(S-adenosylmethionine,SAM),能够作为众多甲基转移酶的甲基供体影响组蛋白甲基化修饰水平[79],其异常会导致胚胎早期发育的阻滞及H3K4me3等修饰的异常[80];α-酮戊二酸(α-KG)作为组蛋白去甲基化酶TET等的辅因子,有助于维持多能性与修饰间平衡[81]。IGF-1激活AKT后促使柠檬酸裂解酶(ATP-citrate lyase,ACLY)磷酸化并增强ACLY的核定位,使其能够招募组蛋白乙酰化转移酶(Histone acetyltransferases,HATs)P300和HAT1等,最终增强乙酰辅酶A(Acetyl-CoA)和乙酰化修饰水平以维持早期胚胎发育过程中转录活动的稳定[82]。由此可见,哺乳动物胚胎早期发育过程中的命运决定过程需要信号活动、表观调控、能量代谢等多方面的协同调控,才能够有序完成,为未来发育为完整生命个体提供充足条件。

4 结语

早期胚胎的细胞谱系分化调控与多能性状态密切相关,其中第一、二次谱系分化是奠定胚胎发育格局的关键事件。目前,家畜体外胚胎生产仍面临谱系分化异常导致的发育阻滞问题,且尚未建立真正的全能性或初始态多能干细胞系。因此,深入解析家畜早期胚胎谱系分化的分子机制,不仅有助于揭示其特有的多能性调控网络,为建立稳定高效的家畜多能干细胞系提供理论依据,也能直接指导体外胚胎培养体系的优化,提升胚胎发育效率。由于家畜体内胚胎获取难度大、家畜基因组信息不完整以及注释不全等问题,相比于小鼠,目前对猪、牛、羊早期胚胎谱系分化的研究还不够深入。但是随着基因组信息的不断完善,以及单细胞多组学技术手段的不断深入发展,家畜早期胚胎谱系分化调控特征及其机制将被揭示。
[1]
NIWA H, TOYOOKA Y, SHIMOSATO D, et al. Interaction between Oct3/4 and Cdx2 determines trophectoderm diffe-rentiation[J]. Cell, 2005, 123(5): 917-929.

[2]
NICHOLS J, ZEVNIK B, ANASTASSIADIS K, et al. Formation of pluripotent stem cells in the mammalian embryo depends on the POU transcription factor Oct4[J]. Cell, 1998, 95(3): 379-391.

[3]
CHAMBERS I, COLBY D, ROBERTSON M, et al. Functional expression cloning of nanog, a pluripotency sustaining factor in embryonic stem cells[J]. Cell, 2003, 113(5): 643-655.

[4]
MITSUI K, TOKUZAWA Y, ITOH H, et al. The homeoprotein nanog is required for maintenance of pluripotency in mouse epiblast and ES cells[J]. Cell, 2003, 113(5): 631-642.

[5]
RAMOS-IBEAS P, SANG F, ZHU Q F, et al. Pluripotency and X chromosome dynamics revealed in pig pre-gastrulating embryos by single cell analysis[J]. Nature Communications, 2019, 10: 500.

[6]
CAUFFMAN G, VAN DE VELDE H, LIEBAERS I, et al. Oct-4 mRNA and protein expression during human preimplantation development[J]. Molecular Human Reproduction, 2005, 11(3): 173-181.

[7]
KIRCHHOF N, CARNWATH J W, LEMME E, et al. Expression pattern of Oct-4 in preimplantation embryos of different species[J]. Biology of Reproduction, 2000, 63(6): 1698-1705.

[8]
KOBOLAK J, KISS K, POLGAR Z, et al. Promoter analysis of the rabbit POU5F1 gene and its expression in preimplantation stage embryos[J]. BMC Molecular Biology, 2009, 10(1): 88.

[9]
BERG D K, SMITH C S, PEARTON D J, et al. Trophectoderm lineage determination in cattle[J]. Developmental Cell, 2011, 20(2): 244-255.

[10]
HALL V J, CHRISTENSEN J, GAO Y, et al. Porcine pluripotency cell signaling develops from the inner cell mass to the epiblast during early development[J]. Developmental Dynamics, 2009, 238(8): 2014-2024.

[11]
CHAZAUD C, YAMANAKA Y. Lineage specification in the mouse preimplantation embryo[J]. Development, 2016, 143(7): 1063-1074.

[12]
WICKLOW E, BLIJ S, FRUM T, et al. HIPPO pathway members restrict SOX2 to the inner cell mass where it promotes ICM fates in the mouse blastocyst[J]. PLoS Genetics, 2014, 10(10): e1004618.

[13]
KIM-YIP R P, DENBERG D, FAERBERG D F, et al. Live imaging endogenous transcription factor dynamics reveals mechanisms of epiblast and primitive endoderm fate segregation[J]. Current Biology, 2025, 35(17): 4106-4120.e7.

[14]
MESSERSCHMIDT D M, KEMLER R. Nanog is required for primitive endoderm formation through a non-cell autonomous mechanism[J]. Developmental Biology, 2010, 344(1): 129-137.

[15]
SUGIE K, FUNAYA S, KAWAMURA M, et al. Expression of Dux family genes in early preimplantation embryos[J]. Scientific Reports, 2020, 10: 19396.

[16]
LAI F N, LI L J, HU X Y, et al. NR5A2 connects zygotic genome activation to the first lineage segregation in totipotent embryos[J]. Cell Research, 2023, 33(12): 952-966.

[17]
SOUFI A, DONAHUE G, ZARET K S. Facilitators and impediments of the pluripotency reprogramming factors' initial engagement with the genome[J]. Cell, 2012, 151(5): 994-1004.

[18]
FESTUCCIA N, OWENS N, CHERVOVA A, et al. The combined action of Esrrb and Nr5a2 is essential for murine naïve pluripotency[J]. Development, 2021, 148(17): dev199604.

[19]
ZHU M, CORNWALL-SCOONES J, WANG P Z, et al. Developmental clock and mechanism of de novo polarization of the mouse embryo[J]. Science, 2020, 370(6522): eabd2703.

[20]
ZHU M, LEUNG C Y, SHAHBAZI M N, et al. Actomyosin polarisation through PLC-PKC triggers symmetry breaking of the mouse embryo[J]. Nature Communications, 2017, 8: 921.

[21]
STRUMPF D, MAO C A, YAMANAKA Y, et al. Cdx2 is required for correct cell fate specification and differentiation of trophectoderm in the mouse blastocyst[J]. Development, 2005, 132(9): 2093-2102.

[22]
CHAWENGSAKSOPHAK K, JAMES R, HAMMOND V E, et al. Homeosis and intestinal tumours in Cdx2 mutant mice[J]. Nature, 1997, 386(6620): 84-87.

[23]
ZHI M L, GAO D F, YAO Y X, et al. Elucidation of the pluripotent potential of bovine embryonic lineages facilitates the establishment of formative stem cell lines[J]. Cellular and Molecular Life Sciences, 2024, 81(1): 427.

[24]
ZHI M L, ZHANG J Y, TANG Q Z, et al. Generation and characterization of stable pig pregastrulation epiblast stem cell lines[J]. Cell Research, 2022, 32(4): 383-400.

[25]
ZHANG J Y, LI R B, LUO R J, et al. Tracing and capturing the epiblast pluripotency of sheep preimplantation embryos[J]. Advanced Science, 2025, 12(36): e17764.

[26]
RAYON T, MENCHERO S, NIETO A, et al. Notch and hippo converge on Cdx2 to specify the trophectoderm lineage in the mouse blastocyst[J]. Developmental Cell, 2014, 30(4): 410-422.

[27]
NISHIOKA N, INOUE K I, ADACHI K, et al. The hippo signaling pathway components lats and Yap pattern Tead4 activity to distinguish mouse trophectoderm from inner cell mass[J]. Developmental Cell, 2009, 16(3): 398-410.

[28]
GERRI C, MCCARTHY A, ALANIS-LOBATO G, et al. Initiation of a conserved trophectoderm program in human, cow and mouse embryos[J]. Nature, 2020, 587(7834): 443-447.

[29]
REGIN M, ESSAHIB W, DEMTSCHENKO A, et al. Lineage segregation in human pre-implantation embryos is specified by YAP1 and TEAD1[J]. Human Reproduction, 2023, 38(8): 1484-1498.

[30]
KERAMARI M, RAZAVI J, INGMAN K A, et al. Sox2 is essential for formation of trophectoderm in the preimplantation embryo[J]. PLoS One, 2010, 5(11): e13952.

[31]
KANG M, PILISZEK A, ARTUS J, et al. FGF4 is required for lineage restriction and salt-and-pepper distribution of primitive endoderm factors but not their initial expression in the mouse[J]. Development, 2013, 140(2): 267-279.

[32]
CHOWDHARY S, HADJANTONAKIS A K. Journey of the mouse primitive endoderm: from specification to maturation[J]. Philosophical Transactions of the Royal Society of London Series B, Biological Sciences, 2022, 377(1865): 20210252.

[33]
YAMANAKA Y, LANNER F, ROSSANT J. FGF signal-dependent segregation of primitive endoderm and epiblast in the mouse blastocyst[J]. Development, 2010, 137(5): 715-724.

[34]
THAMODARAN V, BRUCE A W. p38 (Mapk14/11) occupies a regulatory node governing entry into primitive endoderm differentiation during preimplantation mouse embryo development[J]. Open Biology, 2016, 6(9): 160190.

[35]
POKRASS M J, RYAN K A, XIN T C, et al. Cell-cycle-dependent ERK signaling dynamics direct fate specification in the mammalian preimplantation embryo[J]. Developmental Cell, 2020, 55(3): 328-340.e5.

[36]
NINOMIYA-TSUJI J, KAJINO T, ONO K, et al. A resorcylic acid lactone, 5Z-7-oxoZeaenol, prevents inflammation by inhibiting the catalytic activity of TAK1 MAPK kinase kinase[J]. Journal of Biological Chemistry, 2003, 278(20): 18485-18490.

[37]
HAYASHI Y, FURUE M K, TANAKA S, et al. BMP4 induction of trophoblast from mouse embryonic stem cells in defined culture conditions on laminin[J]. In Vitro Cellular & Developmental Biology - Animal, 2010, 46(5): 416-430.

[38]
GRAHAM S J L, WICHER K B, JEDRUSIK A, et al. BMP signalling regulates the pre-implantation development of extra-embryonic cell lineages in the mouse embryo[J]. Nature Communications, 2014, 5: 5667.

[39]
SIMMET K, KUROME M, ZAKHARTCHENKO V, et al. OCT4/POU5F1 is indispensable for the lineage differentiation of the inner cell mass in bovine embryos[J]. The FASEB Journal, 2022, 36(6): e22337.

[40]
SIMMET K, ZAKHARTCHENKO V, PHILIPPOU-MASSIER J, et al. OCT4/POU5F1 is required for NANOG expression in bovine blastocysts[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(11): 2770-2775.

[41]
KUIJK E W, VAN TOL L T, VAN DE VELDE H, et al. The roles of FGF and MAP kinase signaling in the segregation of the epiblast and hypoblast cell lineages in bovine and human embryos[J]. Development, 2012, 139(5): 871-882.

[42]
BOU G, LIU S C, SUN M J, et al. CDX2 is essential for cell proliferation and polarity in porcine blastocysts[J]. Development, 2017, 144(7): 1296-1306.

[43]
RODRÍGUEZ A, ALLEGRUCCI C, ALBERIO R. Modulation of pluripotency in the porcine embryo and iPS cells[J]. PLoS One, 2012, 7(11): e49079.

[44]
MORADI M, RIASI A, OSTADHOSSEINI S, et al. Expression profile of FGF receptors in preimplantation ovine embryos and the effect of FGF2 and PD173074[J]. Growth Factors, 2015, 33(5/6): 393-400.

[45]
REIK W. Stability and flexibility of epigenetic gene regulation in mammalian development[J]. Nature, 2007, 447(7143): 425-432.

[46]
GU T P, GUO F, YANG H, et al. The role of Tet3 DNA dioxygenase in epigenetic reprogramming by oocytes[J]. Nature, 2011, 477(7366): 606-610.

[47]
BORGEL J, GUIBERT S, LI Y F, et al. Targets and dynamics of promoter DNA methylation during early mouse development[J]. Nature Genetics, 2010, 42(12): 1093-1100.

[48]
SMITH Z D, CHAN M M, MIKKELSEN T S, et al. A unique regulatory phase of DNA methylation in the early mammalian embryo[J]. Nature, 2012, 484(7394): 339-344.

[49]
SANTOS F, HENDRICH B, REIK W, et al. Dynamic reprogramming of DNA methylation in the early mouse embryo[J]. Developmental Biology, 2002, 241(1): 172-182.

[50]
LI J Y, PU M T, HIRASAWA R, et al. Synergistic function of DNA methyltransferases Dnmt3a and Dnmt3b in the methylation of Oct4 and nanog[J]. Molecular and Cellular Biology, 2007, 27(24): 8748-8759.

[51]
ODA M, YAMAGIWA A, YAMAMOTO S, et al. DNA methylation regulates long-range gene silencing of an X-linked homeobox gene cluster in a lineage-specific manner[J]. Genes & Development, 2006, 20(24): 3382-3394.

[52]
KIM J J, KINGSTON R E. Context-specific polycomb mechanisms in development[J]. Nature Reviews Genetics, 2022, 23(11): 680-695.

[53]
ZHENG H, HUANG B, ZHANG B J, et al. Resetting epigenetic memory by reprogramming of histone modifications in mammals[J]. Molecular Cell, 2016, 63(6): 1066-1079.

[54]
CHEN Z Y, DJEKIDEL M N, ZHANG Y. Distinct dynamics and functions of H2AK119ub1 and H3K27me3 in mouse preimplantation embryos[J]. Nature Genetics, 2021, 53(4): 551-563.

[55]
LIU X Y, WANG C F, LIU W Q, et al. Distinct features of H3K4me3 and H3K27me3 chromatin domains in pre-implantation embryos[J]. Nature, 2016, 537(7621): 558-562.

[56]
BRINKMAN A B, GU H C, BARTELS S J, et al. Sequential ChIP-bisulfite sequencing enables direct genome-scale investigation of chromatin and DNA methylation cross-talk[J]. Genome Research, 2012, 22(6): 1128-1138.

[57]
WANG C F, LIU X Y, GAO Y W, et al. Reprogramming of H3K9me3-dependent heterochromatin during mammalian embryo development[J]. Nature Cell Biology, 2018, 20(5): 620-631.

[58]
LIU M, YUE Y Z, CHEN X B, et al. Genome-coverage single-cell histone modifications for embryo lineage tracing[J]. Nature, 2025, 640(8059): 828-839.

[59]
LU X K, ZHANG Y, WANG L J, et al. Evolutionary epigenomic analyses in mammalian early embryos reveal species-specific innovations and conserved principles of imprinting[J]. Science Advances, 2021, 7(48): eabi6178.

[60]
ZHOU C, HALSTEAD M M, BONNET‐GARNIER A, et al. Histone remodeling reflects conserved mechanismsof bovine and human preimplantationdevelopment[J]. EMBO Reports, 2023, 24(3): EMBR202255726.

[61]
OOI S K T, QIU C, BERNSTEIN E, et al. DNMT3L connects unmethylated lysine 4 of histone H3 to de novo methylation of DNA[J]. Nature, 2007, 448(7154): 714-717.

[62]
IVANOVA E, CANOVAS S, GARCIA-MARTÍNEZ S, et al. DNA methylation changes during preimplantation development reveal inter-species differences and reprogramming events at imprinted genes[J]. Clinical Epigenetics, 2020, 12(1): 64.

[63]
HALSTEAD M M, MA X, ZHOU C, et al. Chromatin remodeling in bovine embryos indicates species-specific regulation of genome activation[J]. Nature Communications, 2020, 11: 4654.

[64]
XU R M, LI S, WU Q, et al. Stage-specific H3K9me3 occupancy ensures retrotransposon silencing in human pre-implantation embryos[J]. Cell Stem Cell, 2022, 29(7): 1051-1066.e8.

[65]
BECKER J S, NICETTO D, ZARET K S. H3K9me3-dependent heterochromatin: barrier to cell fate changes[J]. Trends in Genetics, 2016, 32(1): 29-41.

[66]
HUANG J J, ZHANG H Y, WANG X L, et al. Impairment of preimplantation porcine embryo development by histone demethylase KDM5B knockdown through disturbance of bivalent H3K4me3-H3K27me3 modifications[J]. Biology of Reproduction, 2015, 92(3): 72.

[67]
GLANZNER W G, GUTIERREZ K, RISSI V B, et al. Histone lysine demethylases KDM5B and KDM5C modulate genome activation and stability in porcine embryos[J]. Frontiers in Cell and Developmental Biology, 2020, 8: 151.

[68]
LEPIKHOV K, ZAKHARTCHENKO V, HAO R, et al. Evidence for conserved DNA and histone H3 methylation reprogramming in mouse, bovine and rabbit zygotes[J]. Epigenetics & Chromatin, 2008, 1(1): 8.

[69]
XU Q H, XIE W. Epigenome in early mammalian development: inheritance, reprogramming and establishment[J]. Trends in Cell Biology, 2018, 28(3): 237-253.

[70]
BURTON A, TORRES-PADILLA M E. Epigenome dynamics in early mammalian embryogenesis[J]. Nature Reviews Genetics, 2025, 26(9): 587-603.

[71]
ADHAMI H AL, BARDET A F, DUMAS M, et al. A comparative methylome analysis reveals conservation and divergence of DNA methylation patterns and functions in vertebrates[J]. BMC Biology, 2022, 20(1): 70.

[72]
BOUCHEREAU W, JOUNEAU L, ARCHILLA C, et al. Major transcriptomic, epigenetic and metabolic changes underlie the pluripotency continuum in rabbit preimplantation embryos[J]. Development, 2022, 149(17): dev200538.

[73]
WANG Y P, LEI Q Y. Metabolite sensing and signaling in cell metabolism[J]. Signal Transduction and Targeted Therapy, 2018, 3: 30.

[74]
CHI F T, SHARPLEY M S, NAGARAJ R, et al. Glycolysis-independent glucose metabolism distinguishes TE from ICM fate during mammalian embryogenesis[J]. Developmental Cell, 2020, 53(1): 9-26.e4.

[75]
HOUGHTON F D. Energy metabolism of the inner cell mass and trophectoderm of the mouse blastocyst[J]. Differentiation, 2006, 74(1): 11-18.

[76]
ZHANG J, ZHAO J, DAHAN P, et al. Metabolism in pluripotent stem cells and early mammalian development[J]. Cell Metabolism, 2018, 27(2): 332-338.

[77]
AARDEMA H, VOS P L, LOLICATO F, et al. Oleic acid prevents detrimental effects of saturated fatty acids on bovine oocyte developmental competence[J]. Biology of Reproduction, 2011, 85(1): 62-69.

[78]
GUO J, KIM N H, CUI X S. Inhibition of fatty acid synthase reduces blastocyst hatching through regulation of the AKT pathway in pigs[J]. PLoS One, 2017, 12(1): e0170624.

[79]
ROJE S. S-Adenosyl-l-methionine: beyond the universal methyl group donor[J]. Phytochemistry, 2006, 67(15): 1686-1698.

[80]
SHYH-CHANG N, LOCASALE J W, LYSSIOTIS C A, et al. Influence of threonine metabolism on S-adenosylmethionine and histone methylation[J]. Science, 2013, 339(6116): 222-226.

[81]
CAREY B W, FINLEY L W S, CROSS J R, et al. Intracellular α-ketoglutarate maintains the pluripotency of embryonic stem cells[J]. Nature, 2015, 518(7539): 413-416.

[82]
MA Y R, ZHANG Y Y, YANG W J, et al. The nuclear localization of ACLY guards early embryo development through recruiting P300 and HAT1 to promote histone acetylation and transcription[J]. Advanced Science, 2025, 12(31): e14367.

Outlines

/

〈 〉