畜禽干细胞基础研究与应用

家畜早期胚胎发育及胚胎来源干细胞研究进展

  • 何金运 1 ,
  • 赵子墨 1 ,
  • 张啸微 1 ,
  • 冯志强 1 ,
  • 高登峰 2 ,
  • 郅明雷 , 1
展开
  • 1. 中国农业大学生物学院/畜禽生物育种全国重点实验室/分子设计育种前沿科学中心,北京 100093
  • 2. 四川农业大学动物科学技术学院,四川 成都 611130
郅明雷(1992—),男,山东泰安人,副教授,研究方向:干细胞与发育生物学,E-mail:。

何金运(2006—),女,四川成都人,中国农业大学生物学院2024级生物科学(理科试验班)本科生。现阶段在郅明雷副教授指导下开展科研训练。大学生创新创业训练计划国家级项目负责人。研究方向:生命科学,E-mail:。

高登峰(1993—),男,山西柳林人,博士,研究方向:家畜胚胎发育及生物信息学,E-mail:四川农业大学博士后。2023年于中国农业大学获得理学博士学位,师从韩建永教授。致力于以生物信息学方法解析物种发育及调控。具体方向包括:家畜早期胚胎发育及其调控机制解析,昼夜节律调控脂肪沉积等。以共同第一作者身份在Nature Communi-cations、Cell Reports、Aging Cell等国际主流期刊上发表了多篇学术论文。主持国家自然科学基金青年基金项目。

收稿日期: 2025-12-31

  网络出版日期: 2026-09-10

基金资助

国家自然科学基金(32402757)

国家自然科学基金(32502849)

国家科技重大专项(2025ZD0552101)

重庆英才大会首届卓越工程师大赛揭榜攻坚赛揭榜应征项目

中央高校基本科研业务费专项(2025TC140)

中国农业大学2115人才工程

Advances in early embryonic development and embryo-derived stem cells in livestock

  • Jinyun He 1 ,
  • Zimo Zhao 1 ,
  • Xiaowei Zhang 1 ,
  • Zhiqiang Feng 1 ,
  • Dengfeng Gao 2 ,
  • Minglei Zhi , 1
Expand
  • 1. College of Biological Sciences, State Key Laboratory of Animal Biotech Breeding, Frontiers Science Center for Molecular Design Breeding, China Agricultural University, Beijing, 100093
  • 2. College of Animal Science and Technology, Sichuan Agricultural University, Chengdu, 611130, Sichuan

Received date: 2025-12-31

  Online published: 2026-09-10

摘要

家畜胚胎来源干细胞分离自家畜早期胚胎,兼具自我更新能力与多向分化潜能。胚胎干细胞的分离建系本质上是对体内多能性状态的捕获与体外维持;而家畜早期胚胎/胚外组织发育过程中的多能性动态演变,则为界定胚胎来源干细胞的多能性特征提供了关键参照。本综述聚焦猪、牛、羊等家畜的早期胚胎发育及其胚胎来源干细胞研究,系统梳理了合子基因组激活、第一/二次胚胎谱系特化及胚胎原肠化等关键事件,并从发育时序、信号通路、分子表达和表型特征等维度,比较了家畜早期胚胎发育与人类、小鼠的异同。在此基础上,本文进一步按发育潜能对胚胎来源干细胞进行归类,从扩展多能干细胞、胚胎干细胞和胚外干细胞三个层面综述了家畜相关研究的最新进展,系统比较了三类干细胞在分离时期、细胞与分子特征、关键培养体系及多能性/发育潜能等方面的差异,并展望了其在胚胎及器官发育模拟、遗传育种改良和细胞培养肉生产等方面的应用前景。此外,本文还深入讨论了家畜胚胎来源干细胞研究面临的瓶颈与挑战,涵盖多能性维持与定向分化的精准调控、嵌合体形成及跨物种应用、基因编辑效率与准确性的提升、干细胞胚胎克隆技术等,并对未来研究方向进行了展望,以期为家畜胚胎发育和干细胞研究提供参考。

本文引用格式

何金运 , 赵子墨 , 张啸微 , 冯志强 , 高登峰 , 郅明雷 . 家畜早期胚胎发育及胚胎来源干细胞研究进展[J]. 中国畜禽种业, 2026 , 22(9) : 12 -25 . DOI: 10.19543/j.cnki.1673-4556.20260602.003

Abstract

Embryo-derived stem cells derived from livestock early embryos possess both self-renewal capacity and multidirectional differentiation potential. The isolation and establishment of embryo-derived stem cell lines essentially represent the capture of the pluripotent state from in vivo embryos and its in vitro maintenance; the dynamic evolution of pluripotency during early embryonic and extraembryonic development in livestock provides a key reference for defining the pluripotent characteristics of embryo-derived stem cells. This review focuses on early embryonic development and embryo-derived stem cell research in livestock such as pigs, cattle, and sheep. It systematically outlines key events including zygotic genome activation, the first and second lineage specification, and gastrulation, and compares the similarities and differences between early embryonic development in livestock and that in humans and mice from perspectives such as developmental timing, signaling pathways, molecular expression, and phenotypic features. On this basis, the review further categorizes embryo-derived stem cells according to their developmental potential, summarizing the latest research progress in livestock from three aspects: expanded pluripotent stem cells, embryonic stem cells, and extra-embryonic stem cells. It systematically compares the differences between these three types of stem cells in terms of isolation stage, cellular and molecular characteristics, key culture systems, and pluripotency and developmental potential, and discusses their application prospects in areas such as embryo and organ development modeling, genetic breeding improvement, and cell-cultured meat production. Furthermore, the review delves into the bottlenecks and challenges faced by research on livestock embryo-derived stem cells, covering precise regulation of pluripotency maintenance and directed differentiation, chimera formation and cross-species applications, improvement of gene editing efficiency and accuracy, stem cell embryo cloning technologies, among others. It also provides an outlook on future research directions, aiming to offer references for studies on livestock embryonic development and stem cells.

家畜作为农业经济体系中重要的蛋白质资源载体和生物医学研究模型,其繁殖效率与遗传改良水平直接影响畜牧业的可持续发展和生物技术应用潜力。以猪、牛、羊为代表的经济动物,因其在种质资源保护、农业产业化及人类疾病研究中的战略地位,其早期胚胎发育机制的解析已成为发育生物学研究的前沿领域[1]。近年来,随着单细胞测序、表观遗传组学和类器官培养等技术的突破,家畜胚胎发育调控网络的分子基础逐步被揭示,不仅深化了哺乳动物胚胎发生保守规律的认知,更为精准育种和生物制造提供了关键理论支撑[2]。胚胎来源干细胞作为研究细胞命运决定的核心工具,其建系技术在家畜领域的突破性进展为发育调控机制研究开辟了新路径。相较于传统啮齿类模型,家畜胚胎来源干细胞在维持多能性、分化异质性和物种特异性等方面展现出独特优势,为干细胞介导的种业技术创新、体外组织培养、疾病模型构建及异种器官移植等应用提供了更贴近实际的实验系统[3]。然而,家畜胚胎干细胞的自我更新机制、谱系分化的精准调控、嵌合、克隆和基因编辑瓶颈等科学问题仍有待系统阐明。本综述聚焦家畜早期胚胎发育的分子调控网络,系统梳理胚胎干细胞建系技术的关键突破与现存挑战,深入探讨其在农业生物技术转化中的应用前景,旨在为家畜发育生物学研究提供理论框架,并推动干细胞技术向遗传改良、组织工程和再生医学等领域的深度转化[4]。

1 猪、牛、羊早期胚胎发育情况概述

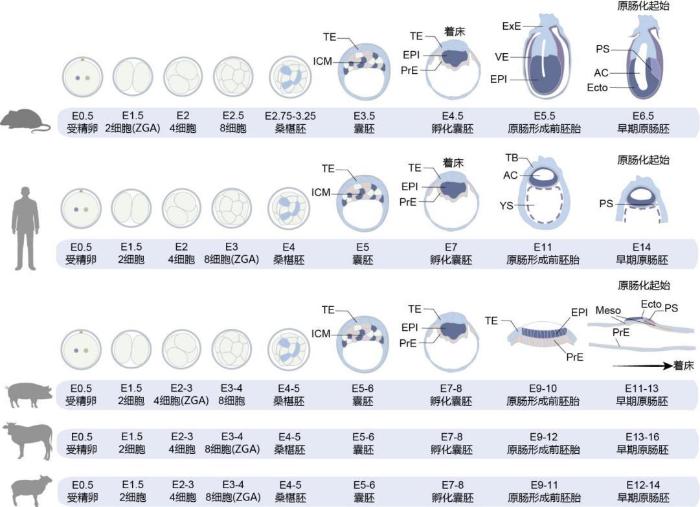
猪、牛、羊作为重要的家畜和生物医学模型,深入解析它们的胚胎发育调控机制对家畜育种、胚胎克隆和再生医学等均具有重要意义。随着单细胞组学技术的发展,人们对猪、牛、羊胚胎发育的分子机制有了更深入的见解。下面将对猪、牛、羊早期胚胎发育的特征进行阐述,并比较人、鼠与猪、牛、羊胚胎发育关键事件的差异(图1)。
图1 家畜(猪、牛、羊)、小鼠与人类胚胎关键发育事件及发生时间的综合比较

注:E、ICM、TE、TB、EPI、PrE、ExE、VE、AC、YS、PS、Meso和Ecto分别代表胚胎发育天数、内细胞团、滋养外胚层、滋养层、上胚层、原始内胚层、胚外外胚层、内脏内胚层、羊膜腔、卵黄囊、原条、中胚层和外胚层。本图使用Adobe Illustrator 2024绘制。

Fig. 1 Comparative analysis of key developmental events and their timing in livestock(pig,cattle,sheep),mouse and human embryos

Note: E, ICM, TE, TB, EPI, PrE, ExE, VE, AC, YS, PS, Meso, and Ecto represent embryonic development days, inner cell mass, trophectoderm, trophoblast, epiblast, primitive endoderm, extraembryonic ectoderm, visceral endoderm, amniotic cavity, yolk sac, primitive streak, mesoderm and ectoderm, respectively. The figure was created using Adobe Illustrator 2024.

1.1 合子基因组激活

猪、牛、羊的胚胎发育均遵循受精、卵裂、合子基因组激活(Zygotic genome activation, ZGA)、桑椹胚向囊胚发育、谱系特化和原肠化等基本过程,但在时间进程和分子特征上存在物种差异。受精是精卵融合形成合子的关键步骤。此阶段胚胎的mRNA主要来源于母体卵细胞,胚胎自身的基因组尚未活跃转录。对于猪、牛和羊而言,卵母细胞的受精成功率通常较高,并非妊娠建立的主要限制因素[5]。受精成功后,胚胎进入快速卵裂期,依次经历2细胞、4细胞、8~16细胞等阶段,最终形成无腔的桑椹胚。在发育初期,胚胎完全依赖母体储存的RNA和蛋白质来驱动细胞分裂等生命活动,此时合子自身的基因组仍处于沉默状态。随后,胚胎发育进入一个关键的转折点——ZGA。这是一个高度动态且精密调控的过程:一方面,母源储存的转录本被有序降解;另一方面,胚胎自身的基因被逐步激活并开始转录。两者在时间上紧密协调,确保发育控制权从母体平稳过渡至胚胎。不同物种面临的选择压力,也会影响其ZGA的时机和转录激活的模式[6]。母源转录本的降解是一个渐进式的过程,少数转录本在受精后很快被降解,而其他转录本则在ZGA开始后才被降解[7]。ZGA并非一个单一的生物学事件,而是2个转录波的组合。在猪、牛、羊等大型家畜研究中,目前更受关注的是主要ZGA(major ZGA),因为这一事件标志着大量胚胎基因开始表达,母源转录本的作用逐渐衰退,是发育进程转换的重要节点[8]。
合子基因组激活过程中胚胎从几乎没有合子基因组转录的状态转变至数千个基因发生转录的状态,这与其他的发育阶段转变形成鲜明对比。其他发育转变过程中,细胞的全局转录状态基本维持稳定,通过一些转录因子调控就足以激活或抑制对应的基因集的表达来决定细胞的谱系分化走向。此外,胚胎依赖于卵母细胞中沉积的转录本和蛋白质进行分裂,导致母源蛋白与合子基因组介导的蛋白的比例发生显著变化[9]。先锋转录因子与转录激活因子如何通过驱动早期染色质重塑来启动ZGA,其机制正受到日益关注[9-11]。
在不同哺乳动物中,ZGA发生的时间并不统一。人类胚胎主要ZGA发生于8细胞期,小鼠ZGA则主要发生于2细胞期[12]。猪的ZGA开始于4细胞时期[13-14]。该阶段,母源效应基因ZAR1在2细胞之前高表达,随后下调。DNA甲基转移酶基因DNMT1在8细胞之前高表达,随后下调,预示了全基因组甲基化的开始[15]。牛的ZGA开始于8细胞时期[16],羊胚胎的单细胞转录组分析显示其ZGA主要开始于8细胞阶段[17]。在人与小鼠早期胚胎中,核糖体相关基因与染色质重塑基因的表达存在差异,但猪、牛、羊等物种中尚未见类似报道[18-19]。相关研究均指出,早期胚胎发育伴随着母体mRNA的清除与合子基因组转录的启动[20]。发育至桑葚胚阶段时,尽管内细胞团与外滋养层细胞尚未完全分化,但已为后续的谱系分化奠定基础。

1.2 胚胎第一次谱系特化

合子基因组激活之后,胚胎经过连续卵裂,胚胎体积保持不变而细胞数目逐渐增加。在这一过程中,卵裂球发生非对称分裂、极化和致密化,在致密化过程中卵裂球彼此相互作用,表面细胞建立顶端-基底极性,细胞发生重排,出现内外结构。大部分极化细胞位于胚胎外部,分化为滋养外胚层(Trophectoderm, TE),非极化细胞则根据自身所处的位置决定分化方向:若能参与外侧结构形成,则分化为TE;若不能则分化为内细胞团(Inner cell mass, ICM)[21]。ICM/TE的分离称之为第一次谱系特化。
有研究发现,猪E5晚期桑葚胚阶段,ICM/TE谱系出现分离,E6早期囊胚阶段ICM/TE特征进一步明确。该阶段,PDGFRA在E5胚胎pre-ICM中开始表达,NANOG在E6 ICM升高;DAB2在E5 pre-TE中表达升高,GATA2、GATA3在E6胚胎TE中特异性表达。值得注意的是,核编码线粒体基因活性也伴随着谱系特化出现区别[13]。牛的谱系指定特征与猪非常相似,牛E5胚胎中可见TE标记基因DAB2基因首先出现倾向性表达,而ICM标记基因并不能区分出两大谱系,直至E6,ICM标记基因如PDGFRA、NANOG才开始表达,ICM/TE谱系明显分离[22]。绵羊胚胎谱系指定则略有区别,羊E5胚胎并未见明显的谱系特征基因具备表达倾向,而在E6,ICM/TE谱系彻底分离[17]。但不可否认,驱动ICM和TE分化的关键转录因子总体上是保守的。

1.3 胚胎第二次谱系特化

在完成第一次谱系特化后,胚胎ICM经历第二次谱系特化,一类细胞维持多能性状态,称之为上胚层(Epibalst, EPI),另一类细胞形成原始内胚层(Primitive endoderm, PrE),在双胚层胚胎中也称为下胚层(Hypoblast, HYPO)。这是一个渐进式的过程,NANOG、GATA6和其他谱系标记基因在细胞命运决定前就已在ICM中呈现异质性表达,即盐-胡椒式分布,直至不同的细胞转录调控网络趋于稳定[23-24]。小鼠中这一过程由Nanog/Fgf4/Gata6信号轴所推动。猪胚胎相关研究发现,E7猪早期胚胎EPI和HYPO出现明确的分群,随后EPI和HYPO持续发育,其中,NANOG和OTX2在E6 ICM、E7~E10 EPI中持续表达[13]。牛胚胎在E10~E12可区分出确切的EPI/HYPO,各谱系表达基因与猪较为接近[22]。羊胚胎在E8开始明确区分EPI/HYPO,标记基因在3个物种间近乎一致[17]。这些研究共同发现,猪、牛、羊的谱系特化机制可能高度保守。

1.4 胚胎原肠化

原肠发生是所有多细胞生物发育的一个基本过程,动物的身体结构开始逐渐产生,该过程是协调细胞多样性的关键一环。原肠化的核心形态学事件是原条(Primitive streak, PS)的形成。在原条出现后,细胞通过原条进行迁移和重排,从而建立外胚层(Ectoderm)、中胚层(Mesoderm)、内胚层(Endoderm)。小鼠胚胎原肠化开始于胚胎E6.5,人类胚胎原肠化大约始于受精后第14天(卡内基分期第6期,CS6)[12]。猪胚胎在E11胚胎刚开始伸长时即出现TBXT阳性的中胚层前体和SOX17阳性的内胚层前体,提示原肠化启动早期的分子变化特征[13,25-27]。单细胞图谱显示,这些胚层前体细胞随发育时间增加,各区域特化程度愈加明显,细胞类型逐渐增多而多能性逐渐丧失,细胞能量供给方式发生氧化磷酸化和糖酵解的切换。相比之下,牛羊的胚胎原肠化报道较少。现有数据显示,牛胚胎在E14可见明确的中胚层及内胚层细胞群,且原始生殖细胞(Primordial germ cells, PGCs)也开始发生[22]。羊胚胎相关研究认为其阶段与猪接近,E12开始原肠化[17]。总的来看,猪、牛、羊3种家畜在胚胎发育关键阶段均遵循类似的谱系分化程序和调控网络,如随着第一二次谱系分化的完成,JAK-STAT通路快速下调;在胚盘细胞增殖阶段,则由TGFβ和FGF通路主导,胚胎伸长和原肠化启动后,WNT,TGFβ和FGF等信号通路逐渐占据主导地位,在细胞命运决定中发挥核心作用。

2 家畜胚胎来源干细胞的研究进展

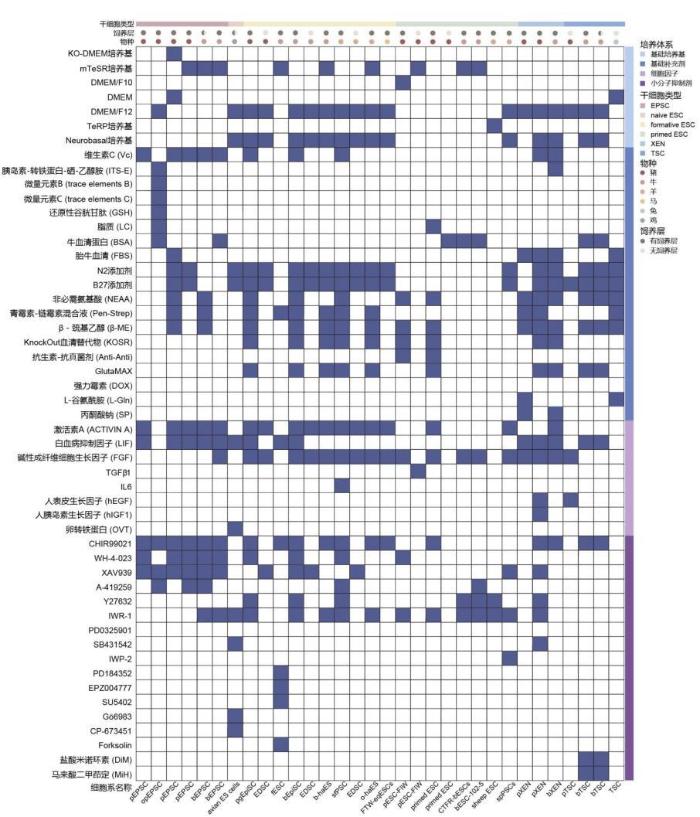
1981年第一株小鼠胚胎干细胞成功分离建系[28-29],开启了现代干细胞研究的新时代。然而,将这一技术应用于大型家畜却困难重重。尽管在20世纪80年代末和90年代初就有人尝试从绵羊[30]、猪[31-32]、牛[33]上建立类似的胚胎干细胞,但是早期报道的家畜胚胎干细胞多为“胚胎干细胞样细胞”,在多能性、自我更新能力和稳定性方面与小鼠胚胎干细胞相比仍然有距离。直到近10年来,随着对哺乳动物胚胎发育和干细胞多能性维持机制的深入理解,家畜胚胎来源干细胞建系工作才取得一定的进展。与此同时,胚胎来源干细胞的定义与分类也开启了新的认识阶段。传统上,基于小鼠胚胎干细胞(Embryonic stem cells, ESCs)和上胚层干细胞(Epiblast stem cells, EpiSCs)的特征来区分“原始态”(Naïve)和“启动态”(Primed)多能性状态的方法,已不足以全面反映胚胎来源干细胞的复杂性与发育潜力[34]。例如,某些源自早期囊胚ICM扩展多能干细胞(Expanded pluripotent stem cells, EPSCs)展现出胚内胚外谱系双重发育潜能[35],而起源于上胚层的形成态多能干细胞(Formative PSCs),则与传统来源于上胚层的Primed EpiSCs存在显著差异[36]。为了更加精确地定义和分类胚胎来源干细胞,可以依据发育潜能将其划分为扩展多能干细胞、胚胎干细胞、胚外干细胞(Extraembryonic stem cells)三大类。家畜不同种类胚胎来源干细胞培养体系的研究进展如图2所示。
图2 家畜胚胎来源干细胞培养体系汇总

注:本图汇总了猪、牛、羊等常见畜禽胚胎来源干细胞的基础培养基、饲养层、基础补充剂、细胞因子和小分子抑制剂。EPSC、naïve ESC、formative ESC、primed ESC、XEN和TSC分别代表扩展多能干细胞、原始态胚胎干细胞、形成态胚胎干细胞、启动态胚胎干细胞、胚外内胚层干细胞和滋养层干细胞。本图使用Adobe Illustrator 2024绘制。

Fig. 2 Summary of culture systems for domestic animal embryo-derived stem cells

Note: This figure summarizes the basic culture media, feeder layers, basic supplements, cytokines, and small-molecule inhibitors for embryonic stem cells derived from common livestock and poultry such as pigs, cattle, and sheep. EPSC, naïve ESC, formative ESC, primed ESC, XEN, and TSC represent extended pluripotent stem cells, naïve embryonic stem cells, formative embryonic stem cells, primed embryonic stem cells, extraembryonic endoderm stem cells, and trophoblast stem cells, respectively. This figure was created using Adobe Illustrator 2024.

2.1 扩展多能干细胞

扩展多能干细胞(Expanded pluripotent stem cells, EPSCs)的核心特征是能够同时向胚胎谱系和胚外谱系分化发育,它们在发育上更接近受精卵至早期桑椹胚的全能状态,具有形成完整生命体的潜力,在小鼠或者人上,代表性细胞系包括全能干细胞[37-38]、扩展多能干细胞[35,39]等。
在家畜领域,代表性的双潜能干细胞系为猪和牛EPSCs[40, 41],它们均来源于E5~E6早期囊胚内细胞团细胞,具有典型的穹顶状克隆特征,碱性磷酸酶染色(Alkaline phosphatase staining, AP)呈阳性,均表达核心多能性标记蛋白(POU5F1、SOX2、NANOG)和多能性表面标记蛋白(SSEA1和SSEA4),同时免疫染色显示两者都表达E-CADHERIN,表明具有上皮细胞特征。在培养体系上,二者除基础培养基略有不同,均需要GSK3β抑制剂(如CHIR99021),SRC抑制剂(WH-4-023)和WNT抑制剂(IWR-1-endo、XAV939等),以及Vc,Activin A和LIF来维持干细胞自我更新。在增殖能力上,猪、牛EPSC单细胞克隆效率有限,猪EPSC可每3~4 d传代一次,传代比例为1∶8,可维持40代以上。牛EPSC表现出更强的增殖能力,可每2~3 d传代一次,传代比例为1∶4,可维持82代以上,且能在无饲养层条件下长期培养[40-41]。体外分化方面,两者都能通过拟胚体分化为三胚层细胞和滋养层样细胞。体内嵌合体实验显示,猪和牛EPSC虽然总体对胚胎的嵌合贡献较低,但在胚胎组织和胚外组织(如胎盘)均可检测到,表现出扩展的发育潜能。同时,EPSC还能在体外诱导产生原始生殖细胞样细胞(Primordial germ cell-like cells, PGCLCs)。猪EPSC通过瞬时表达SOX17能产生表达NANOS3、TNAP以及PGC特异性基因(POU5F1、NANOG、BLIMP1、TFAP2C)的细胞;牛EPSC同样能通过SOX17瞬时表达产生表达PGC富集基因的细胞。值得注意的是,2种EPSC都对MEK1/2抑制剂敏感,添加PD0325901会导致细胞死亡和分化,这与小鼠和人ESCs不同[40-41]。

2.2 胚胎干细胞

胚胎干细胞(Embryonic stem cells, ESCs)主要致力于向胚胎本身的组织和器官分化。根据发育潜能可分为Naïve、Formative和Primed 3种多能性状态[36]。以小鼠胚胎干细胞为例,Naïve ESCs来源于植入前囊胚内细胞团和早期上胚层,在转录水平上与E3.75~E4.5 EPI相似性较高,具有较高的可塑性和发育潜能[42-43]。Formative ESCs来源于胚胎原肠化前上胚层,转录水平与E5.5~E6.0原肠化前上胚层非常相似,具有向PGC诱导分化的能力[44-45]。Primed ESCs来源于附植后胚胎上胚层到原节前胚胎外胚层,在转录水平与中期原肠胚E6.5~E7.5外胚层相似性较高,其分化潜能相对受限,更倾向于特定谱系分化[46]。

(1) Naïve PSCs

在家畜领域,Naïve PSCs的建立及维持难度较大,尽管在建立Naïve PSCs上研究者们进行了大量探索,但是始终没有来源于家畜胚胎干细胞的生殖系嵌合动物出生[47-51]。胚胎发育的多能性为干细胞多能性提供了内在参照,通过解析家畜早期胚胎多能性变化及信号通路依赖性变化的分子机制,研究人员发现猪、牛、羊胚胎Naïve多能性的衰减与两个关键事件密切相关:一是胚胎的前两次谱系分化(E4~E7),二是LIF/STAT3信号通路相关基因表达的快速下调[13,17,22]。这种动态变化从分子机制上制约了猪、牛、羊Naïve胚胎干细胞的建立,主要面临以下三重挑战:①建立窗口处于发育上急剧动态变化的时期;②失去了利用LIF/STAT3通路维持Naïve多能性状态的能力;③表观调控网络复杂。这些因素共同导致Naïve PSCs的建立异常艰难。
在禽类干细胞领域,近期建立了具有Naïve特征的胚胎干细胞。拟胚体诱导形成实验证明其可分化为3个胚层,且鸡ES细胞系在移植到鸡胚胎后能生成生殖细胞,鸡、鹌鹑和鹅的ES细胞可高效整合到发育中的鸡EGK.X期胚胎内并参与嵌合体的形成。鸟类ESCs依赖于OT/3i/chLIF体系,是通过小分子IWR-1抑制WNT通路,Gö6983分子抑制PKC通路,SB431542抑制Activin/TGF-β 通路,chLIF激活LIF/STAT3通路并结合卵转铁蛋白(Ovotrans-ferrin)的协同作用共同防止ES细胞的分化,并维持其长期更新能力[52]。

(2) Formative PSCs

对于家畜Formative PSCs,代表性的进展主要是猪、牛、羊原肠化前上胚层干细胞的建立[13,17,22]。通过对家畜早期胚胎多能性变化和信号通路依赖性的分析发现,家畜Naïve多能性状态在胚胎发育过程中处于第一和第二次谱系分化急剧变化期。然而从上胚层建立到胚胎原肠化起始之间,存在3~4 d上胚胎谱系相对稳定的时期。在此期间,上胚层表达NANOG、SOX2、POU5F1等核心多能性标记,并在信号通路上一方面依赖FGF/ERK、TGFβ/SMAD信号通路的持续表达,另一方面依赖于WNT信号通路的抑制,这为建立猪、牛、羊formative PSCs提供了时间窗口和体系筛选依据。由此建立了原肠化前上胚层干细胞(Pre-gastrulation epiblast stem cells, pgEpiSCs),在牛上称为牛上胚层干细胞(Bovine epiblast stem cells, bEpiSCs),在羊上称为羊形成态多能干细胞(Sheep formative pluripotent stem cells, sfPSCs),但均属于pgEpiSCs[13,17,22]。猪、牛、羊pgEpiSCs均呈现穹顶状克隆特征,AP染色呈阳性,表达核心多能性转录因子NANOG、SOX2、POU5F1,也表达SSEA1/4等多能性表面标记,这揭示了物种间Formative多能性保守的进化基础。在增殖能力方面,牛pgEpiSCs增殖能力最强,倍增时间约12 h,猪、羊pgEpiSCs倍增时间约14~16 h,三者的单细胞克隆效率约20%~30%。在分化能力方面,猪、牛、羊pgEpiSCs均具备完整三胚层分化潜能。在嵌合能力方面,GFP标记的sfPSCs可整合至嵌合体胎儿多组织,但贡献率较低;值得一提的是,以猪pgEpiSCs为供体细胞,成功获得了成活的多基因编辑克隆仔猪,体现了pgEpiSCs作为基因编辑工具细胞和核移植供体细胞的应用价值。在PGC诱导方面,猪牛pgEpiSCs均可诱导生成PGCLCs,羊的sfPSCs则需要进一步验证。
除此之外,仅依赖Activin A、FGF2、XAV939(AFX)也可维持家畜胚盘来源干细胞的自我更新[53],但EOMES的表达使其更倾向于原肠化启动时的状态,同时它们也具有向PGCLCs诱导的能力。具有formative特征的马FTW-eqESCs来源于ICSI和SCNT囊胚,体外培养依赖于FGF2、TGFβ和WNT信号激活剂(FTW)培养体系[45];牛/羊单倍体胚胎干细胞系(b-haES和o-haES)依赖于FGF2、Activin A、CHIR99021和IWR-1-endo(FACE)培养体系,它们来源于注入精子的去核卵母细胞或移除雌原核的合子,在体外可被诱导分化为PGCLCs,也可以获得成活的基因编辑克隆动物[54]。
综合以上家畜Formative PSCs特征,均依赖FGF/ERK和TGFβ/SMAD通路的激活来维持干细胞自我更新能力,而对于WNT信号通路,则根据其来源胚胎时期的差异而略有不同。总体来说,处于胚胎发育早期的上胚层,越需要WNT信号的激活,而越靠近原肠化起始阶段,越需要对WNT信号通路的总体抑制[55]。而LIF/STAT3信号通路,则是对Formative PSCs多能性的有益补充,激活LIF/STAT3信号通路有利于Formative PSCs多能性的提高[17]。

(3) Primed PSCs

早期研究所建立的猪、牛、羊胚胎干细胞多为Primed PSCs,对应原肠胚早期至中期上胚层细胞,这与小鼠和人的Primed多能性阶段在发育时序上保守。代表性的细胞系包括猪pESC-FIW(FGF2、IWR-1-endo、CHIR99021和Activin A)细胞系[56],牛CTFR-bESCs(FGF2、IWR1)[57]和羊spPSCs[17]。在克隆形态上均表现为单层扁平上皮样克隆,并高表达核心多能性转录因子(POU5F1、SOX2、NANOG),同时AP阳性。培养体系均从早期的饲养层和血清依赖,向化学成分确定、无饲养层的方向发展。核心信号调控策略高度一致:激活FGF/ERK通路、提供TGF-β/Activin A信号,并强力抑制经典WNT通路。三者均能通过拟胚体形成和畸胎瘤实验证明其具有分化为三胚层的潜能,符合多能性干细胞的基本定义。这3种家畜的Primed PSCs均无法贡献于嵌合体形成,这反映了Primed态细胞发育潜能上的限制,也是其与体内更早期多能态的关键区别。

2.3 胚外干细胞

胚外干细胞来源于胚胎的胚外谱系,主要在胚胎发育过程中负责支持胚胎的生长和营养供给,包括滋养层干细胞(Trophoblast stem cells, TSCs)[58] 和胚外内胚层干细胞(Extraembryonic endoderm stem cells, XENs)[59],这类细胞具有向胎盘或卵黄囊发育的潜能,对胚胎着床和发育研究具有重要的科研价值。

(1) 滋养层干细胞

在家畜领域,牛TSCs研究较为丰富。代表性的TSCs是来源于E7囊胚的牛滋养层干细胞(bTSCs)[60]。bTSCs高表达TE相关的转录因子,包括CDX2、SFN、ELF5、GATA3等,并高表达多能性相关基因LIN28A和SALL4。bTSCs的培养体系,需要添加LIF、CHIR99021维持自我更新能力,以及DiM和MiH可以减少bTSCs向非滋养层谱系分化,促进滋养层细胞命运稳定[60]。有趣的是,LCDM培养体系(LIF、CHIR99021、DIM、MIH)也是小鼠和人EPSC培养基的关键成分[35]。在体外分化方面,bTSCs能分化为成熟滋养层细胞,细胞表达滋养层标志物。在体内分化方面,将bTSCs皮下注射到小鼠体内分化为成熟滋养层细胞[60]。此外bTSCs还能与建立的bEPSC共同构建类囊胚[61]。猪的TS样细胞可以从SCNT或IVF囊胚获得,也可以从E10和E13猪着床前胚胎中滋养层组织分离培养得到,但无法完全复现滋养层干细胞向胎盘各类细胞的完整分化过程[62-63]。

(2) 胚外内胚层干细胞

家畜XENs代表性进展是分别从猪和牛的E6[64]和E8[65]囊胚内细胞团建立pXENs和bXENs,它们均有稳定扁平状呈单层且边缘清晰的上皮细胞形态,AP染色呈阴性[59,65]。在分子特征上均表达原始内胚层核心标志基因GATA4、GATA6、SOX17和胚外内胚层(Extraembryonic endoderm, ExE)相关标志物PDGFRA;均不表达多能性核心标志物POU5F1、SOX2、NANOG和TE标志物CDX2 [59,64-66]。在体外分化能力验证中,pXEN细胞能够形成拟胚体并检测到一些内脏内胚层(Visceral endoderm, VE)和壁内胚层(Parietal endoderm, PE)相关基因的表达上调。体内分化能力验证中,由ES培养基(FBS、hrLIF、hrbFGF)建立的pXEN移植到受体小鼠后未观察到畸胎瘤形成,表明所注射的该培养体系得到的pXEN体内分化潜能有限[59,64],而在改良后的4FY和2FYSC的联合培养系得到的pXEN细胞系在嵌合体实验中表明其对胚胎发育第6.5天的VE和PE谱系均有贡献[67]。此外bXEN可与bEPSCs、bTSCs三维组装形成EPTX类囊胚,其形态与E8体外受精囊胚相似[65]。
传统的pXEN分离和培养依赖于LIF和CHIR99021的添加,改良后利用4FY(IL6、sIL-6 Receptor、Activin A、IGF1、Y27632)培养基分离,2FYSC(FGF2、Y27632、SB431542、CHIR99021)培养基传代[67],bXEN采用相似方式在建立和维持上采用不同培养基[65],均保证了XEN细胞系的稳定建立。它们的建立培养基虽成分不同但均以移除WNT抑制剂的方式促使细胞退出多能性向XEN细胞命运分化[65,67]。值得注意的是,pXEN和bXEN在后续的传代维持上对WNT通路的调控方向不同。pXEN后续的传代添加了Y27632、SB431542、CHIR99021,其中SB431542调控内胚层的分化,CHIR99021激活WNT通路促进细胞命运稳定[67]。bXEN在专用培养基bXENMS进行传代,添加FGF4、BMP4、IL-6、XAV939、A83-01,其中FGF4促进牛囊胚原始内胚层细胞的增殖和分化,IL-6和XAV939对WNT通路抑制维持bXEN的干性[65]。
需要强调的是,在特定的体外培养条件下,上述细胞类型可以通过外源性细胞因子或小分子抑制剂的调控,使其分化发育命运发生转变[68-69]。这种由外界条件诱导的细胞命运转变与细胞在正常生理条件下的固有发育潜能存在差异,应作为独立情境进行讨论,在此不做赘述。这种由扩展多能干细胞,胚胎干细胞和胚外干细胞3种类型构成的分类体系能更全面地反映胚胎来源干细胞在不同发育阶段的生物学特性和发育潜力。

3 家畜胚胎来源干细胞的应用前景

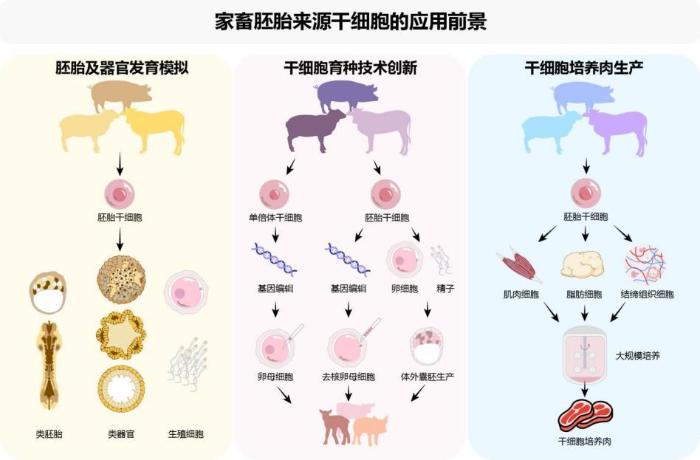
家畜胚胎来源干细胞具有广阔的应用前景,已超越基础生物学范畴,成为推动畜牧科学、生物医学和食品工业变革的关键技术,下面将对其具体的应用前景展开论述(图3)。
图3 家畜胚胎来源干细胞应用前景

注:本图使用Adobe Illustrator 2024绘制。

Fig. 3 Application prospects of livestock embryo-derived stem cells

Note: The figure was created using Adobe Illustrator 2024.

3.1 模拟胚胎及器官发育的理想模型系统

家畜胚胎来源干细胞因其多向分化潜能,是研究胚胎及器官发育机制的理想模型。其分化谱系比成体干细胞更全面,为器官体外精准构建奠定了基础。
在胚胎模拟方面,牛胚胎干细胞(bEPSCs)与滋养层干细胞(TSCs)协同培养建立了稳定的类囊胚结构,解决了牛胚胎样本稀缺的瓶颈[61]。猪胚胎干细胞(pESCs)也可在体外形成类似囊胚样结构[70]。羊胚胎来源干细胞可分化为PGCs,并进一步发育为卵母细胞样细胞和卵丘-卵母细胞复合体,卵丘-卵母细胞复合体通过孤雌激活能发育为胚胎,为辅助生殖技术和体细胞克隆提供了新资源[71]。
三维类器官技术拓展了其应用。pEPSC能定向诱导出多种心脏相关细胞,为解析分化机制提供模型[72]。此外,家畜胚胎干细胞构建的肠道、肾脏和脑类器官为器官发育研究、药物筛选和毒性测试提供了更接近体内环境的平台[73-74]。

3.2 干细胞育种技术创新遗传改良

干细胞育种技术代表了动物遗传改良领域的革命性突破,其核心在于利用多能干细胞在体外诱导形成功能性配子,通过体外受精产生子代胚胎,大幅缩短世代间隔,提升育种效率[75]。猪pgEpiSCs可以耐受多轮次基因编辑,并可以作为供体细胞通过核移植技术产生成活仔猪[13]。牛单倍体干细胞经过基因编辑后,作为供体细胞注入卵母细胞,产生成活基因编辑克隆牛,该技术克服了“二倍体体细胞编辑+体细胞克隆”方法效率低下的问题[54]。
此外,建立胚胎干细胞系是先进的种质资源保存策略,可实现遗传材料的长期稳定冷冻保存,规避活体保种的风险与高昂成本[76]。该技术还可与基因组选择、基因编辑结合,形成多技术融合的精准育种体系。单细胞测序等技术解析了猪、牛、羊胚胎多能性动态轨迹与关键信号通路,明确了Naïve、Formative和Primed上胚层发育特征,为优化干细胞育种提供了分子层面的理论依据[13,17,22]。

3.3 培养肉生产的革新性解决方案

细胞培养肉技术为解决全球粮食安全、环境压力等问题提供新思路。家畜胚胎干细胞因其强大的增殖分化能力,成为培养肉生产的理想种子细胞。2023年,中国农业大学韩建永团队首次实现了猪pgEpiSCs在无血清、无转基因条件下的肌纤维分化,并利用植物源支架构建了三维类肉组织,为产业化突破技术瓶颈[77]。进一步通过pgEpiSCs向肌肉、脂肪及血管细胞的高效多谱系特异性分化,结合可扩展的无支架3D悬浮培养体系,首次实现了一种多能干细胞来源多组织、营养可控的细胞培养肉制备[78]。牛bESCs能分化为骨骼肌、脂肪和结缔组织,为构建完整肉质结构和风味奠定基础。bESCs在特定诱导条件下能高效分化为成肌细胞,并在生物反应器中大规模培养,实现规模化生产的可能[79]。牛bEpiSCs也实现了肌肉分化,为追踪细胞命运等提供工具[22]。
尽管在成本、质地和风味方面仍面临挑战,但通过开发新型生物反应器、优化培养基等手段,培养肉的生产效率与品质正不断提升。与传统畜牧业相比,培养肉的生产有望大幅减少资源占用,降低温室气体排放,规避屠宰和疫病风险,是未来蛋白质供给的一种可持续模式[80]。目前已开发的以牛肌肉干细胞为来源的新型培养肉汉堡与同类牛肉饼相比,其温室气体排放量减少87%,能源消耗降低39%,土地使用影响减少90%,水资源使用量减少96%,缓解传统肉类带来的环境问题[81]。通过与传统畜牧业的量化对比,培养牛肉的温室气体排放可减少至传统牛肉的10%以下,土地资源利用率是传统牛肉的5~80倍,水资源消耗显著低于牛肉,能源效率优于传统牛肉[82]。

4 家畜胚胎来源干细胞的挑战及展望

4.1 多能性维持与定向分化的精准调控

家畜胚胎来源干细胞在干细胞育种与再生医学等领域潜力巨大,但其实际应用面临多能性维持和定向分化精准调控的双重挑战。不同于小鼠和人类,家畜胚胎来源干细胞的多能性调控网络具有显著的物种特异性。因此,深入研究家畜胚胎本身的多能性变化规律及其依赖的信号通路,能为干细胞的多能性维持和定向分化提供关键的内在参照,这是提升其分化效率与可控性的基础。中国农业大学研究团队通过对猪、牛、羊早期胚胎进行单细胞转录组测序,成功解析了猪胚胎发育过程中多能性动态变化的转录组特征,明确了Naïve、Formative和Primed多能性状态转变的分子标志[13,17,22]。这些发现为优化培养体系提供了直接依据,并据此建立了适用于猪、牛、羊胚胎干细胞长期培养的3i/LAF体系,为后续干细胞育种等应用提供了高质量的种子细胞。
干细胞来源的类器官已成为重要的药物筛选和疾病模拟平台。在人类和小鼠研究中,胚胎干细胞已被广泛用于生成脑、肠、肝、肾等多种类器官[83]。利用家畜胚胎干细胞构建类器官,并应用于病原体感染机制研究和疫苗开发前景广阔。然而,干细胞定向分化的具体路径尚不清晰,这是制约该技术发展的核心瓶颈,其成因包括微环境信号调控不精准、分化路径设计不合理以及细胞响应异质性大等。未来可结合多组学分析、虚拟细胞模型、人工智能与机器学习等手段,高通量筛选最优的小分子组合与培养条件,从而提高分化效率的可预测性。
当前类器官仍面临体积小、结构简单、功能不完善等局限,与真实器官的应用需求存在差距。通过引入微流控芯片、3D生物打印等工程学方法,有望构建出血管化程度更高、结构更复杂的类器官[83]。同时,建立更成熟的家畜类器官体外培养系统也是一大挑战,因为每个器官都有其独特的发育轨迹和微环境需求,体外系统难以精准模拟这种复杂的时空动态。例如,肝脏发育需要精确协调内胚层分化、肝芽形成和血管化等多个环节,涉及上百个基因的时序表达,这对体外重构功能性肝组织提出了极高要求。
推动器官发生研究离不开跨学科融合。材料科学提供了能模拟不同器官细胞外基质的新型生物支架,如特定性能的水凝胶等[84];微纳加工技术可制造精确的微环境拓扑结构,引导干细胞的空间自组织;先进的生物传感器与成像技术则实现了对发育过程的实时动态监测。这些技术创新与干细胞生物学相结合,正逐步揭开器官发生的奥秘。

4.2 嵌合体形成与跨物种应用的瓶颈突破

家畜胚胎来源干细胞在胚胎嵌合技术中具有重要的应用潜力,例如用于构建基因编辑动物模型及选育优良性状,但核心问题在于现有胚胎来源干细胞系的嵌合能力普遍不足。已报道的猪[13,40]、牛[41]、羊[17,51]胚胎干细胞均未能有效贡献于生殖系。值得注意的是,李光鹏教授团队建立的牛精子样单倍体胚胎干细胞可参与生殖腺形成[54],为相关研究提供了新线索。
在技术层面,家畜嵌合胚胎的制备效率低且成本高昂。嵌合胚胎的源头细胞——卵母细胞多来源于屠宰场,且质量参差不齐,体外获得的胚胎质量通常低于体内胚胎,制约了后续操作的成功率。同时,家畜领域缺乏像小鼠“四倍体补偿”那样公认的多能性评价金标准[85],现有评估主要依赖分子标志物及有限的嵌合实验,体系尚不完善。
在生物学机制上,家畜胚胎干细胞存在独特的表观遗传调控特征,其DNA甲基化、组蛋白修饰状态与小鼠不同[40],可能影响多能性网络的稳定性。X染色体失活与印记基因调控等机制的种间差异[86],也可能导致嵌合胚胎发育异常。跨物种嵌合体的形成高度依赖于供体干细胞与宿主胚胎在发育时间、信号通路和细胞凋亡调控上的协调,而外源干细胞注入宿主胚胎后,常因细胞凋亡或无法与宿主细胞有效竞争而被淘汰,这也是跨物种嵌合效率低下的关键原因之一。即便进行同种嵌合,干细胞与受体胚胎间的相容性问题仍可能影响外源细胞的存活与整合[87]。
从应用角度看,该技术还面临伦理与监管的挑战,涉及动物福利和基因编辑生物安全等问题,相关法规有待健全。此外,技术流程复杂、周期长、成本高,并且家畜群体遗传背景存在高度异质性,均限制了其在畜牧业中的产业化应用。未来需通过深化发育生物学基础研究,捕获更原始或兼容的干细胞多能性状态,利用基因工程增加细胞适应性,或探索更宽容的发育窗口,并与技术创新相结合,逐步突破现有障碍,以推动其在畜牧育种与再生医学领域的应用。

4.3 基因编辑效率提升与准确性优化

猪、牛、羊等家畜是人类肉、奶等核心农产品的重要来源。利用胚胎干细胞结合基因编辑对家畜进行遗传改良,在培育具有优质、高产、抗病新品种,开发细胞培养肉以及制备异种器官移植供体等方面具有巨大潜力[13,17,22]。然而,这一技术路径从理论到成熟应用,仍面临多重挑战。首先,核移植的成功率与供体细胞的状态密切相关。多能性不稳定、分化倾向高的干细胞作为核供体,其重编程能力差[88]。其次,基因编辑的效率与精确性在家畜干细胞中仍需优化。尽管CRISPR-Cas系统已极大简化了基因敲除操作,但在家畜多能干细胞中实现高效、无痕的基因敲入或精准的碱基替换仍然很困难,主要受限于同源定向修复效率低下。
展望未来,基因编辑技术结合家畜干细胞领域可能会聚焦以下3个方向:一是优化培养条件或者开发新型重编程策略,建立更加稳定高质量的家畜多能干细胞系,保证细胞长期培养的基因组稳定性;二是开发高保真Cas蛋白变体,将新型基因编辑工具,如碱基编辑器[89]和先导编辑器[90]与优化的干细胞培养体系相结合,在降低脱靶效应的同时,提升编辑精准度和安全性;三是异种器官移植供体的制备,利用基因编辑技术敲除猪等家畜基因组中引起人体免疫排斥的关键抗原(如α-Gal)和内源性逆转录病毒基因,并结合干细胞技术培育供体器官,是解决人类器官短缺问题的前沿方向[91]。该领域已从概念验证进入临床前安全性和有效性评估阶段,是家畜干细胞与基因编辑技术最具潜力的医学应用之一[92]。
家畜胚胎干细胞与基因编辑技术相结合,对家畜遗传改良,对保障粮食安全、提升农业效率具有战略意义,为农业可持续发展和人类健康带来变革性影响。

4.4 干细胞胚胎克隆技术瓶颈突破

目前,家畜克隆与胚胎干细胞技术的应用主要面临两大相互关联的制约因素。首先,在生物学层面,表观遗传重编程效率低下是限制克隆成功率的核心瓶颈。供体核在受体卵母细胞中无法被完全重编程,导致克隆胚胎普遍存在DNA去甲基化不全[93]、组蛋白修饰(如H3K4me3、H3K9me3和H3K27me3)异常富集等表观遗传缺陷[88,94-95]。这些缺陷进而干扰ZGA时期的正常转录程序,造成早期胚胎发育阻滞与高损耗率,最终使克隆囊胚率显著低于体外受精胚胎[96]。其次,在技术体系层面,该技术涉及从胚胎分离培养、核移植、胚胎移植到克隆个体护理的多环节复杂链条[97]。每一关键步骤均高度依赖精密的仪器设备与专业化的操作技能,而对从业人员与平台建设要求极高。当前,相应的标准化流程、专用工具与配套支撑体系尚不健全,严重阻碍了该技术从实验室向规模化应用的转化。
为突破上述瓶颈,需从基础机制研究、技术流程优化及支撑体系构建三方面实施系统性策略。针对重编程障碍,应深入探究并模拟受精卵的高效重编程环境。一方面,可借鉴单倍体干细胞研究中成功的“类精子”表观重塑策略[54],系统筛选小分子化合物组合或信号调节因子,以全局性纠正克隆胚胎的异常表观修饰[98];另一方面,可利用CRISPR-dCas9等表观遗传编辑工具,对特定基因组印记区域进行靶向修正,从而为克服重编程障碍提供精准解决方案。针对技术链条复杂与体系不完善的问题,必须推动全流程的标准化与质控体系建设,制定从卵母细胞与供体细胞筛选、核移植操作到胚胎培养的严格标准操作规程。同时,应大力发展自动化显微操作与智能化培养监测设备,以降低技术门槛与人为误差。此外,系统的支撑平台与人才队伍建设至关重要。需在高校与科研机构加强跨学科人才培养,并对现有技术人员进行系统化、进阶式培训,以此建立稳定的高水平专业团队。最终,通过构建“基础突破-技术优化-体系支撑”三位一体的协同创新模式,方能有效推动家畜胚胎工程技术的成熟与大规模应用。

5 结语

家畜早期胚胎发育与干细胞研究正以前所未有的深度揭示家畜发育的保守规律与物种特性。这些基础发现不仅为提升家畜繁殖与育种效率提供了关键理论依据,更通过干细胞模型的建立,为干细胞育种、再生医学、疾病建模及生物制造等前沿领域开辟了创新路径。未来,通过多学科交叉与技术整合,突破多能性精准调控、高贡献嵌合、高效基因编辑与克隆等瓶颈,将推动家畜胚胎来源干细胞技术从基础研究迈向产业应用,最终实现农业与生物医学的协同发展。
[1]
HU B J, JIN H, SHI Y, et al. Single-cell RNA-Seq reveals the earliest lineage specification and X chromosome dosage compensation in bovine preimplantation embryos[J]. The FASEB Journal, 2024, 38(4): e23492.

[2]
SCATOLIN G N, MING H, WANG Y J, et al. Single-cell transcriptional landscapes of bovine peri-implantation development[J]. iScience, 2024, 27(4): 109605.

[3]
CAI L, HYUN S H, KIM E. Stem cell factor’s role in enhancing the quality of fertilized and cloned porcine embryos for improved embryonic stem cell derivation[J]. Frontiers in Veterinary Science, 2023, 10: 1285530.

[4]
BOTIGELLI R C, GUILTINAN C, ARCANJO R B, et al. In vitro gametogenesis from embryonic stem cells in livestock species: recent advances, opportunities, and challenges to overcome[J]. Journal of Animal Science, 2023, 101: skad137.

[5]
BAZER F W, JOHNSON G A. Early embryonic development in agriculturally important species[J]. Animals, 2024, 14(13): 1882.

[6]
FRIEDLI M, TRONO D. The developmental control of transposable elements and the evolution of higher species[J]. Annual Review of Cell and Developmental Biology, 2015, 31: 429-451.

[7]
TADROS W, LIPSHITZ H D. The maternal-to-zygotic transition: a play in two acts[J]. Development, 2009, 136(18): 3033-3042.

[8]
DU Z Q, LIANG H, LIU X M, et al. Single cell RNA-seq reveals genes vital to in vitro fertilized embryos and parthenotes in pigs[J]. Scientific Reports, 2021, 11: 14393.

[9]
JUKAM D, SHARIATI S A M, SKOTHEIM J M. Zygotic genome activation in vertebrates[J]. Developmental Cell, 2017, 42(4): 316-332.

[10]
GASSLER J, KOBAYASHI W, GÁSPÁR I, et al. Zygotic genome activation by the totipotency pioneer factor Nr5a2[J]. Science, 2022, 378(6626): 1305-1315.

[11]
MIAO L Y, TANG Y, BONNEAU A R, et al. The landscape of pioneer factor activity reveals the mechanisms of chromatin reprogramming and genome activation[J]. Molecular Cell, 2022, 82(5): 986-1002.e9.

[12]
ZHAI J L, XIAO Z Y, WANG Y M, et al. Human embryonic development: from peri-implantation to gastrulation[J]. Trends in Cell Biology, 2022, 32(1): 18-29.

[13]
ZHI M L, ZHANG J Y, TANG Q Z, et al. Generation and characterization of stable pig pregastrulation epiblast stem cell lines[J]. Cell Research, 2022, 32(4): 383-400.

[14]
KONG Q R, YANG X, ZHANG H, et al. Lineage specification and pluripotency revealed by transcriptome analysis from oocyte to blastocyst in pig[J]. The FASEB Journal, 2020, 34(1): 691-705.

[15]
GIRALDO A M, DECOURCY K, BALL S F, et al. Gene expression of Dnmt1 isoforms in porcine oocytes, embryos, and somatic cells[J]. Cellular Reprogramming, 2013, 15(4): 309-321.

[16]
LU X K, ZHANG Y, WANG L J, et al. Evolutionary epigenomic analyses in mammalian early embryos reveal species-specific innovations and conserved principles of imprinting[J]. Science Advances, 2021, 7(48): eabi6178.

[17]
ZHANG J Y, LI R B, LUO R J, et al. Tracing and capturing the epiblast pluripotency of sheep preimplantation embryos[J]. Advanced Science, 2025, 12(36): e17764.

[18]
CHEN Z Y, DJEKIDEL M N, ZHANG Y. Distinct dynamics and functions of H2AK119ub1 and H3K27me3 in mouse preimplantation embryos[J]. Nature Genetics, 2021, 53(4): 551-563.

[19]
BOROVIAK T, STIRPARO G G, DIETMANN S, et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplan-tation development[J]. Development, 2018, 145(21): dev167833.

[20]
SHA Q Q, WU Y W, JIA M Y, et al. Maternal mRNA clearance is associated with the prevention of precocious transcription and genome instability in mouse early embryos[J]. Science Bulletin, 2026, 71(5): 1003-1007.

[21]
KOROTKEVICH E, NIWAYAMA R, COURTOIS A, et al. The apical domain is required and sufficient for the first lineage segregation in the mouse embryo[J]. Developmental Cell, 2017, 40(3): 235-247.e7.

[22]
ZHI M L, GAO D F, YAO Y X, et al. Elucidation of the pluripotent potential of bovine embryonic lineages facilitates the establishment of formative stem cell lines[J]. Cellular and Molecular Life Sciences, 2024, 81(1): 427.

[23]
NOWOTSCHIN S, SETTY M, KUO Y Y, et al. The emergent landscape of the mouse gut endoderm at single-cell resolution[J]. Nature, 2019, 569(7756): 361-367.

[24]
SAIZ N, WILLIAMS K M, SESHAN V E, et al. Asynchronous fate decisions by single cells collectively ensure consistent lineage composition in the mouse blastocyst[J]. Nature Com-munications, 2016, 7: 13463.

[25]
SIMPSON L, STRANGE A, KLISCH D, et al. A single-cell atlas of pig gastrulation as a resource for comparative embryology[J]. Nature Communications, 2024, 15: 5210.

[26]
RAMOS-IBEAS P, SANG F, ZHU Q F, et al. Pluripotency and X chromosome dynamics revealed in pig pre-gastrulating embryos by single cell analysis[J]. Nature Communications, 2019, 10: 500.

[27]
LIU T B, LI J, YU L Q, et al. Cross-species single-cell transcriptomic analysis reveals pre-gastrulation developmental differences among pigs, monkeys, and humans[J]. Cell Discovery, 2021, 7: 8.

[28]
EVANS M J, KAUFMAN M H. Establishment in culture of pluripotential cells from mouse embryos[J]. Nature, 1981, 292(5819): 154-156.

[29]
MARTIN G R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells[J]. Proceedings of the National Aca-demy of Sciences of the United States of America, 1981, 78(12): 7634-7638.

[30]
HANDYSIDE A, HOOPER M L, KAUFMAN M H, et al. Towards the isolation of embryonal stem cell lines from the sheep[J]. Roux’s Archives of Developmental Biology, 1987, 196(3): 185-190.

[31]
NOTARIANNI E, LAURIE S, MOOR R M, et al. Maintenance and differentiation in culture of pluripotential embryonic cell lines from pig blastocysts[J]. Journal of Reproduction and Fertility Supplement, 1990, 41: 51-56.

[32]
STROJEK R M, REED M A, HOOVER J L, et al. A method for cultivating morphologically undifferentiated embryonic stem cells from porcine blastocysts[J]. Theriogenology, 1990, 33(4): 901-913.

[33]
SAITO S, STRELCHENKO N, NIEMANN H. Bovine embryonic stem cell-like cell lines cultured over several passages[J]. Roux’s Archives of Developmental Biology, 1992, 201(3): 134-141.

[34]
NICHOLS J, SMITH A. Naive and primed pluripotent states[J]. Cell Stem Cell, 2009, 4(6): 487-492.

[35]
YANG Y, LIU B, XU J, et al. Derivation of pluripotent stem cells with in vivo embryonic and extraembryonic potency[J]. Cell, 2017, 169(2): 243-257.e25.

[36]
SMITH A. Formative pluripotency: the executive phase in a developmental continuum[J]. Development, 2017, 144(3): 365-373.

[37]
SHEN H, YANG M, LI S Y, et al. Mouse totipotent stem cells captured and maintained through spliceosomal repression[J]. Cell, 2021, 184(11): 2843-2859.e20.

[38]
PENG B, WANG Q Y, ZHANG F X, et al. Mouse totipotent blastomere-like cells model embryogenesis from zygotic genome activation to post implantation[J]. Cell Stem Cell, 2025, 32(3): 391-408.e11.

[39]
YANG J, RYAN D J, WANG W, et al. Establishment of mouse expanded potential stem cells[J]. Nature, 2017, 550(7676): 393-397.

[40]
GAO X F, NOWAK-IMIALEK M, CHEN X, et al. Establishment of porcine and human expanded potential stem cells[J]. Nature Cell Biology, 2019, 21(6): 687-699.

[41]
ZHAO L X, GAO X F, ZHENG Y X, et al. Establishment of bovine expanded potential stem cells[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(15): e2018505118.

[42]
TAKASHIMA Y, GUO G, LOOS R, et al. Resetting transcription factor control circuitry toward ground-state pluripotency in human[J]. Cell, 2014, 158(6): 1254-1269.

[43]
THEUNISSEN T W, POWELL B E, WANG H Y, et al. Systematic identification of culture conditions for induction and maintenance of naive human pluripotency[J]. Cell Stem Cell, 2014, 15(4): 471-487.

[44]
KINOSHITA M, BARBER M, MANSFIELD W, et al. Capture of mouse and human stem cells with features of formative pluripotency[J]. Cell Stem Cell, 2021, 28(3): 453-471.e8.

[45]
YU L Q, WEI Y L, SUN H X, et al. Derivation of intermediate pluripotent stem cells amenable to primordial germ cell specification[J]. Cell Stem Cell, 2021, 28(3): 550-567.e12.

[46]
KOJIMA Y, KAUFMAN-FRANCIS K, STUDDERT J B, et al. The transcriptional and functional properties of mouse epiblast stem cells resemble the anterior primitive streak[J]. Cell Stem Cell, 2014, 14(1): 107-120.

[47]
ZHANG M L, WANG C Y, JIANG H B, et al. Derivation of novel naive-like porcine embryonic stem cells by a reprogramming factor-assisted strategy[J]. The FASEB Journal, 2019, 33(8): 9350-9361.

[48]
ZHANG X, XUE B H, LI Y, et al. A novel chemically defined serum- and feeder-free medium for undifferentiated growth of porcine pluripotent stem cells[J]. Journal of Cellular Physiology, 2019, 234(9): 15380-15394.

[49]
LI Y, WU S, LI X C, et al. Wnt signaling associated small molecules improve the viability of pPSCs in a PI3K/Akt pathway dependent way[J]. Journal of Cellular Physiology, 2020, 235(7/8): 5811-5822.

[50]
LI C, HAN X J, WANG J, et al. Mixed-lineage leukemia 1 inhibition enhances the differentiation potential of bovine embryonic stem cells by increasing H3K4 mono-methylation at active promoters[J]. International Journal of Molecular Sciences, 2023, 24(15): 11901.

[51]
JIN M H, HUANG S H, ZHOU S W, et al. Efficient derivation of stable sheep embryonic stem cells opens a new avenue for agricultural and biomedical application[J]. Journal of Advanced Research, 2026, 82: 155-169.

[52]
CHEN X, GUO Z, TONG X Y, et al. Derivation of embryonic stem cells across avian species[J]. Nature Biotechnology, 2025: 1-13.

[53]
KINOSHITA M, KOBAYASHI T, PLANELLS B, et al. Pluripotent stem cells related to embryonic disc exhibit common self-renewal requirements in diverse livestock species[J]. Deve-lopment, 2021, 148(23): dev199901.

[54]
YANG L, DI A Q, SONG L S, et al. Generation of modified cows and sheep from spermatid-like haploid embryonic stem cells[J]. Nature Biotechnology, 2025: 1-9.

[55]
LUO Q, PUI H P, CHEN J Y, et al. Epiblast-like stem cells established by Wnt/β-catenin signaling manifest distinct features of formative pluripotency and germline competence[J]. Cell Reports, 2023, 42(1): 112021.

[56]
CHOI K H, LEE D K, KIM S W, et al. Chemically defined media can maintain pig pluripotency network in vitro [J]. Stem Cell Reports, 2019, 13(1): 221-234.

[57]
BOGLIOTTI Y S, WU J, VILARINO M, et al. Efficient derivation of stable primed pluripotent embryonic stem cells from bovine blastocysts[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(9): 2090-2095.

[58]
OKAE H, TOH H, SATO T, et al. Derivation of human trophoblast stem cells[J]. Cell Stem Cell, 2018, 22(1): 50-63.e6.

[59]
PARK C H, JEOUNG Y H, UH K J, et al. Extraembryonic endoderm (XEN) cells capable of contributing to embryonic chimeras established from pig embryos[J]. Stem Cell Reports, 2021, 16(1): 212-223.

[60]
WANG Y J, MING H, YU L Q, et al. Establishment of bovine trophoblast stem cells[J]. Cell Reports, 2023, 42(5): 112439.

[61]
PINZÓN-ARTEAGA C A, WANG Y J, WEI Y L, et al. Bovine blastocyst-like structures derived from stem cell cultures[J]. Cell Stem Cell, 2023, 30(5): 611-616.e7.

[62]
SUASNAVAS E A, HEYWOOD S, WARD A, et al. Isolation and characterization of trophoblast-derived stem-like cells from peri-implantation porcine embryos[J]. Animal Reproduction Science, 2015, 154: 128-141.

[63]
KIM E, CAI L, CHOI H, et al. Distinct properties of putative trophoblast stem cells established from somatic cell nuclear-transferred pig blastocysts[J]. Biological Research, 2024, 57(1): 35.

[64]
ZHANG M L, JIN Y, ZHAO L H, et al. Derivation of porcine extra-embryonic endoderm cell lines reveals distinct signaling pathway and multipotency states[J]. International Journal of Molecular Sciences, 2021, 22(23): 12918.

[65]
MING H, SCATOLIN G N, OJEDA-ROJAS O A, et al. Establishment of bovine extraembryonic endoderm stem cells enables efficient blastoid formation[J]. Cell Reports, 2025, 44(6): 115707.

[66]
SMITH M K, CLARK C C, MCCOSKI S R. Technical note: improving the efficiency of generating bovine extraembryonic endoderm cells[J]. Journal of Animal Science, 2020, 98(7): skaa222.

[67]
WANG H N, ZHONG L, WANG Z F, et al. Wnt inhibition safeguards porcine embryonic stem cells from the acquisition of extraembryonic endoderm cell fates[J]. Advanced Science, 2025, 12(17): 2416802.

[68]
VIUKOV S, SHANI T, BAYERL J, et al. Human primed and naïve PSCs are both able to differentiate into trophoblast stem cells[J]. Stem Cell Reports, 2022, 17(11): 2484-2500.

[69]
XU S, WANG S D, TAM T T K K, et al. Derivation of trophoblast stem cells from human expanded potential stem cells[J]. STAR Protocols, 2023, 4(2): 102354.

[70]
XIANG J Z, WANG H N, SHI B B, et al. Pig blastocyst-like structure models from embryonic stem cells[J]. Cell Discovery, 2024, 10: 72.

[71]
MALIK H N, SINGHAL D K, SAINI S, et al. Derivation of oocyte-like cells from putative embryonic stem cells and parthenogenetically activated into blastocysts in goat[J]. Scientific Reports, 2020, 10: 10086.

[72]
RAWAT H, KORNHERR J, ZAWADA D, et al. Recapitulating porcine cardiac development in vitro: from expanded potential stem cell to embryo culture models[J]. Frontiers in Cell and Developmental Biology, 2023, 11: 1111684.

[73]
SHIUE Y L, YANG J R, LIAO Y J, et al. Derivation of porcine pluripotent stem cells for biomedical research[J]. Theriogenology, 2016, 86(1): 176-181.

[74]
LI M S, GUO X Y, CHENG L X, et al. Porcine kidney organoids derived from Naïve-like embryonic stem cells[J]. International Journal of Molecular Sciences, 2024, 25(1): 682.

[75]
HOU Z C, AN L, HAN J Y, et al. Revolutionize livestock breeding in the future: an animal embryo-stem cell breeding system in a dish[J]. Journal of Animal Science and Biotechnology, 2018, 9(1): 90.

[76]
ZHOU X Y, GAO C, ZHAO W X, et al. Advances in the study of pluripotent stem cells in livestock[J]. Cell Proliferation, 2025, 58(8): e70008.

[77]
ZHU G X, GAO D F, LI L Z, et al. Generation of three-dimensional meat-like tissue from stable pig epiblast stem cells[J]. Nature Communications, 2023, 14: 8163.

[78]
YAO Y, ZHU G, ZHI M, et al. Generation of multitissue cell-cultivated meat via multidirectional differentiation of stable porcine epiblast stem cells [J]. Nature communications, 2026, 17(1).

[79]
ZEHORAI E, MAOR-SHOSHANI A, MOLOTSKI N, et al. From fertilised oocyte to cultivated meat - harnessing bovine embryonic stem cells in the cultivated meat industry[J]. Reproduction, Fertility, and Development, 2023, 36(2): 124-132.

[80]
JARA T C, PARK K, VAHMANI P, et al. Stem cell-based strategies and challenges for production of cultivated meat[J]. Nature Food, 2023, 4(10): 841-853.

[81]
KIM S, BEIER A, SCHREYER H B, et al. Environmental life cycle assessment of a novel cultivated meat burger patty in the United States[J]. Sustainability, 2022, 14(23): 16133.

[82]
RODRÍGUEZ ESCOBAR M I, CADENA E, NHU T T, et al. Analysis of the cultured meat production system in function of its environmental footprint: current status, gaps and recommendations[J]. Foods, 2021, 10(12): 2941.

[83]
WANG D S, VILLENAVE R, STOKAR-REGENSCHEIT N, et al. Human organoids as 3D in vitro platforms for drug discovery: opportunities and challenges[J]. Nature Reviews Drug Dis-covery, 2026, 25(3): 204-226.

[84]
DE LAU W B M, WIJNAKKER J J A P M, VAN SON G J F, et al. A single-chain derivative of an integrin-activating antibody potentiates organoid growth in Matrigel and collagen hydrogels[J]. Nature Biotechnology, 2025: 1-11.

[85]
POSFAI E, SCHELL J P, JANISZEWSKI A, et al. Evaluating totipotency using criteria of increasing stringency[J]. Nature Cell Biology, 2021, 23(1): 49-60.

[86]
ALFEGHALY C, ROUGEULLE C. X chromosome inactivation in mammals: general principles and species-specific consi-derations[J]. EMBO Reports, 2025, 26(14): 3478-3490.

[87]
MORATA TARIFA C, LÓPEZ NAVAS L, AZKONA G, et al. Chimeras for the twenty-first century[J]. Critical Reviews in Biotechnology, 2020, 40(3): 283-291.

[88]
LI Y M, SUN S Y, XU Y T, et al. Efficient somatic cell nuclear transfer by overcoming both pre- and post-implantation epigenetic barriers[J]. Advanced Science, 2025, 12(37): e04669.

[89]
KOMOR A C, KIM Y B, PACKER M S, et al. Programmable editing of a target base in genomic DNA without double-stranded DNA cleavage[J]. Nature, 2016, 533(7603): 420-424.

[90]
ANZALONE A V, RANDOLPH P B, DAVIS J R, et al. Search-and-replace genome editing without double-strand breaks or donor DNA[J]. Nature, 2019, 576(7785): 149-157.

[91]
NIU D, WEI H J, LIN L, et al. Inactivation of porcine endogenous retrovirus in pigs using CRISPR-Cas9[J]. Science, 2017, 357(6357): 1303-1307.

[92]
PHILLIPS K G, ALJABBAN I, WOLBROM D H, et al. Cardiac xenotransplantation: current state and future directions[J]. Circulation, 2025, 152(1): 58-73.

[93]
GAO R, WANG C F, GAO Y W, et al. Inhibition of aberrant DNA re-methylation improves post-implantation development of somatic cell nuclear transfer embryos[J]. Cell Stem Cell, 2018, 23(3): 426-435.e5.

[94]
LIU X, WANG Y Z, GAO Y P, et al. H3K9 demethylase KDM4E is an epigenetic regulator for bovine embryonic development and a defective factor for nuclear reprogramming[J]. Development, 2018, 145(4): dev158261.

[95]
GAO Y, WU F F, TANG D D, et al. H3K9me3 and H3K27me3 are epigenetic barriers to somatic cell nuclear transfer in rabbits[J]. American Journal of Translational Research, 2025, 17(4): 3094-3108.

[96]
ZHANG X L, GAO S R, LIU X Y. Advance in the role of epigenetic reprogramming in somatic cell nuclear transfer-mediated embryonic development[J]. Stem Cells International, 2021, 2021: 6681337.

[97]
MOURA M T. Cloning by SCNT: integrating technical and biology-driven advances[J]. Methods in Molecular Biology, 2023, 2647: 1-35.

[98]
ZHOU K, WANG T T, ZHANG J J, et al. LEUTX regulates porcine embryonic genome activation in somatic cell nuclear transfer embryos[J]. Cell Reports, 2024, 43(6): 114372.

文章导航

/

〈 〉