胚胎发育与干细胞分化调控

家畜多能干细胞向雄性生殖细胞分化的研究进展

  • 赵晴 ,
  • 赵志炎 ,
  • 李雪玲
展开
  • 内蒙古大学省部共建草原家畜生殖调控与繁育国家重点实验室,内蒙古 呼和浩特 010020
李雪玲(1969—),女,内蒙古赤峰市人,研究方向:动物遗传资源与干细胞生物学,E-mail:。

赵晴(2001—),女,河北衡水人,研究方向:动物遗传资源与干细胞生物学,E-mail:。

收稿日期: 2026-01-14

  网络出版日期: 2026-09-10

基金资助

科技创新2030“农业生物育种”重大项目(2023ZD0407504)

国家自然科学基金项目(32160172)

内蒙古自治区科技计划项目(2023KYPT0010)

Research progress on the differentiation of domestic animal pluripotent stem cells into male germ cells

  • Qing Zhao ,
  • Zhiyan Zhao ,
  • Xueling Li
Expand
  • State Key Laboratory for Reproductive Regulation and Breeding of Grassland Livestock, Inner Mongolia University, Hohhot, 010020, Inner Mongolia

Received date: 2026-01-14

  Online published: 2026-09-10

摘要

传统家畜育种模式依赖自然繁殖和表型选择,存在世代间隔长、遗传进展缓慢、难以利用不育或已死亡个体的优良遗传物质等局限。近年来,随着干细胞生物学及表观遗传调控机制研究的深入,利用多能干细胞(Pluripotent stem cells, PSCs)在体外重建配子发生过程,已成为动物遗传育种领域具有突破性的前沿方向之一。当前,促使家畜PSCs向雄性生殖细胞分化的策略可归为三类:细胞因子分步诱导、共培养与微环境模拟,以及导入关键基因定向诱导。尽管这些策略在标志物检测和形态学上已获一定验证,但仍面临分化效率低下、细胞异质性高、所获细胞功能成熟度不足等问题。家畜PSCs具有明显的物种特异性,小鼠和人类细胞常用的培养体系无法直接应用于猪、牛、羊等物种;其多能性维持依赖不同信号通路的组合情况,起始细胞状态各异,致使不同物种间的分化方案难以通用,目前尚缺乏一套公认的标准化流程。此外,技术复杂性与伦理争议等挑战也制约了其规模化应用。未来的突破方向可着眼于:根据物种特有的信号调控图谱研发定制化分化培养基,以摆脱经验式试错的局限;同时结合微流控与类器官芯片技术,将动态物理信号与生化因子调控相协同,从而提升分化过程的精准度。本文系统总结了上述三类策略在家畜中的研究进展,剖析了当前面临的关键难题,并提出了未来的突破方向,以期为后续相关研究提供理论参考。

本文引用格式

赵晴 , 赵志炎 , 李雪玲 . 家畜多能干细胞向雄性生殖细胞分化的研究进展[J]. 中国畜禽种业, 2026 , 22(9) : 103 -112 . DOI: 10.19543/j.cnki.1673-4556.20260727.005

Abstract

The traditional livestock breeding model relies on natural reproduction and phenotypic selection, which has limitations such as long generation interval, slow genetic progress, and difficulty in utilizing the excellent genetic material of sterile or dead individuals. In recent years, with the in-depth study of stem cell biology and epigenetic regulation mechanism, the use of pluripotent stem cells (PSCs) to reconstruct the gametogenesis process in vitro has become one of the breakthrough frontiers in the field of animal genetics and breeding. At present, the strategies for promoting the differentiation of livestock PSCs into male germ cells can be classified into three categories: step-by-step induction of cytokines, co-culture and microenvironment simulation, and directional induction of key genes. Although these strategies have been verified in marker detection and morphology, they still face problems such as low differentiation efficiency, high cell heterogeneity, and insufficient functional maturity of the obtained cells. Livestock PSCs have obvious species specificity, and the culture systems commonly used in mice and human cells cannot be directly applied to species such as pigs, cattle, and sheep. The maintenance of its pluripotency depends on the combination of different signaling pathways, and the initial cell state is different, which makes it difficult to universalize the differentiation programs between different species. At present, there is still a lack of a recognized standardized process. In addition, challenges such as technical complexity and ethical disputes also restrict its large-scale application. The future breakthrough direction can be focused on: developing customized differentiation medium according to the specific signal regulation map of species, so as to get rid of the limitation of empirical trial and error; at the same time, combined with microfluidic and organoid chip technology, the dynamic physical signals are coordinated with the regulation of biochemical factors, thereby improving the accuracy of the differentiation process. This paper systematically summarizes the research progress of the above three strategies in livestock, analyzes the key problems currently faced, and puts forward the future breakthrough direction, in order to provide theoretical reference for the follow-up research.

家畜品种改良是保障全球畜产品供应、推动畜牧产业高质量发展的核心支撑。然而,传统育种模式依赖自然繁殖,世代间隔长、性状选择效率低,严重制约了优良遗传资源的快速扩繁与新品种培育进程[1]。“干细胞育种”理念的提出,为突破上述局限提供了新思路。干细胞,尤其是多能干细胞(Pluripotent stem cells, PSCs),构成了该技术路径的基石。PSCs主要包括来源于早期胚胎的胚胎干细胞(Embryonic stem cells, ESCs)和通过体细胞重编程获得的诱导多能干细胞(Induced pluripotent stem cells, iPSCs),其具备两大核心生物学特性:一是在体外无限增殖的同时能维持稳定的未分化状态;二是具有多向分化潜能,可在特定信号诱导下分化为机体几乎所有细胞类型[2]。这些特性使PSCs成为体外模拟胚胎发育、实施高效基因编辑以及实现体外配子发生的理想载体[3]。
在干细胞育种理念中,生成功能性配子(精子和卵子)是连接细胞操作与动物个体的关键环节。雄性生殖细胞的体外生产对畜牧业具有尤为突出的现实意义:优秀种公畜的遗传贡献可借助其精子被无限放大,从而极大加快优良基因在群体中的扩散。然而,精子发生是一个高度复杂且受精密调控的生物学过程,涉及原始生殖细胞(Primordial germ cells, PGCs)的特化、迁移、增殖,以及精原干细胞(Spermatogonial stem cells, SSCs)的分化、减数分裂与精子形成等多个关键阶段[4-5]。因此,如何在家畜PSCs中高效、精准地重现这一分化路径,诱导其形成功能完整的雄性生殖细胞(尤其是单倍体精子细胞或精子),已成为当前动物繁殖与育种领域的前沿热点与核心技术难题。
目前,相关报道多聚焦于特定物种或单一信号通路的研究,缺乏对不同诱导策略的系统比较与归纳。基于此,本文系统综述了家畜PSCs向雄性生殖细胞分化的研究进展:首先概述该领域的关键科学基础与技术路线;随后聚焦猪、牛、羊等主要经济畜种,深入解析从PSCs高效诱导雄性生殖细胞的三大策略体系——基于细胞因子的分步诱导法、模拟体内微环境的共培养与三维支持体系,以及实现精准操控的基因工程法;最后评估各策略在推动PSCs定向分化中的成效与局限,以期为后续研究提供理论参考。

1 家畜多能干细胞与生殖细胞

生殖细胞(Germ cells, GCs)是家畜繁衍的基础,其发生与发育始于早期胚胎[6]。雄性GCs的形成是一个高度程序化的细胞谱系进程,核心可概括为两个主要阶段:一是生殖谱系的奠定与干细胞库的建立,即PGCs经迁移、定居后分化为具有自我更新能力的SSCs;二是精子的分化与成熟,SSCs启动精子发生程序,通过精密调控的有丝分裂、减数分裂及精子形成,最终产生成熟的单倍体精子[7]。这一体内自然发育过程为体外研究提供了关键依据。要在体外模拟如此复杂的生殖细胞发育进程,关键在于获得高质量的PSCs——其具备在体外定向分化为包括生殖细胞在内的多种细胞类型的潜能,使得在培养皿中重现精子发生成为可能。因此,构建高质量的家畜PSCs并探索其向雄性生殖细胞定向分化的策略,对于实现优良性状的快速传递和提升家畜育种效率具有重要意义。
胚胎干细胞源自发育早期的胚胎,具有无限的增殖能力,能够长时间维持在未分化状态,并可分化为机体几乎所有的细胞类型,其中包括生殖细胞[8]。1981年,英国科学家Evans首次从小鼠囊胚内细胞团中分离出并成功建立了可在体外长时间培养的多能性细胞系[9]。同年,Martin[10]也独立报道了类似工作,并首次将其命名为胚胎干细胞。在干细胞研究领域,真正意义上的胚胎干细胞需符合严格的评判标准:能够长久并且稳定地进行自我更新、表达核心多能性转录因子、具有向三个胚层分化的完整潜能,而最为关键的是具备生殖系嵌合这样的能力。依据上述标准,科学家们一直在致力于构建家畜ESCs细胞系,在20世纪90年代,Notarianni等[11]从猪早期胚胎获取细胞,这些细胞虽表现出ESCs的基本形态并表达部分多能性标记,在最为关键的生殖系嵌合能力方面却没有达到严格标准,但这已是当时家畜胚胎干细胞研究的重大突破。直到2018年,Ross团队才在牛上构建出一种胚胎干细胞系,它不仅能够在体外能够长期稳定自我更新、具有三胚层分化潜能,还在嵌合体实验中初步地显示出有生殖系嵌合的潜力[12]。这是朝着符合多能性严格评判标准的家畜ESCs迈出的关键一步。2021年,李喜和与刘澎涛团队在这个基础上实现了突破,构建了具有胚胎和胚外组织双向分化潜能的牛扩展多能干细胞(Expanded potential stem cells,EPSCs),并在牛嵌合体中验证了它向胚胎和胚外组织分化的能力[13]。2026年,中国农业大学团队再次取得新的突破,他们建立了无饲养层培养体系,这个体系能够支持牛ESCs长期进行扩增,并且证实其处于形成状态的多能性情况,而且还能够稳定分化为原始生殖细胞样细胞(Primordial germ cell-like cells, PGCLCs)[14]。
此外,猪的干细胞研究也取得了里程碑式的突破,刘澎涛团队从发育第5天的猪胚胎中第一次获得EPSCs。该类细胞展现出卓越的增殖能力以及在多个谱系进行分化的潜力[15]。在此成果基础上,该团队进一步阐明了细胞命运决定的关键分子机制,还开创了从早期发育阶段(四细胞或八细胞胚胎)分离干细胞的技术,为家畜EPSCs的构建奠定了基础[16]。2021年,韩建永团队初次从猪E10胚胎上胚层建立了可长期稳定传代(超过240代)、耐受多次基因编辑的胚源多能干细胞系,攻克了猪ESCs建系难题[17]。这几项突破性研究为探索多能干细胞向生殖细胞定向分化提供了关键的核心细胞工具。特别是Ross团队[12]建立的牛ESCs已初步具备生殖系嵌合能力,使得在体外模拟生殖细胞的早期发育变成可能。
诱导多能干细胞是通过向成熟分化细胞中导入特定重编程转录因子,使其发生表观遗传重编程而获得的多能干细胞[18]。2006年,Yamanaka等[19]利用OCT3/4、SOX2、KIF4、C-MYC这四种转录因子,将小鼠的体细胞重编程变为多能干细胞。与ESCs相比较,iPSCs可以在实验室大规模生产,不需要繁育活体动物,它们直接来自皮肤、血液和脂肪这类组织细胞,不需破坏胚胎或卵子,从而避开伦理层面的争议[20]。在形态、自我更新能力、多能性基因表达谱及三胚层分化潜能等方面,iPSCs与ESCs高度相似,所以也具备在体外定向分化为生殖细胞的潜能。2009年多个团队分别报道使用猪胎儿成纤维细胞培育诱导生成iPSCs的情况,但其多能性表达不太稳定[21-22]。此后,该领域取得了一系列突破性进展。2023年,韩建永团队利用化学成分明确的3i/LAF培养体系(GSK3β inhibitor CHIR99021、Tankyrase inhibitor IWR‐1、SRC inhibitor WH‐4‐023、LIF、Activin A和FGF2),成功将来源于老年个体及稀有地方猪品种的成纤维细胞,重编程为没有外源基因整合而且多能性稳定的猪iPSCs[23]。同年吉林大学团队使用牛胎儿成纤维细胞作为饲养层,构建更为完全的重编程牛iPSCs[24]。
另外,内蒙古大学李雪玲团队利用LCDM培养基(含LIF、CHIR99021、Dimethindene maleate和Minocycline),成功将牛iPSCs转化为EPSCs,更进一步地从牛胎儿成纤维细胞直接重编程构建牛EPSCs。此项研究验证了牛iPSCs向EPSCs转化的可行性,为优化重编程技术和家畜多能干细胞建系提供了新策略[25]。2025年,Qin等[26]采用基于绵羊源重编程因子的piggyBac转座子系统,成功构建出具有高多能性并且能够稳定传代的绵羊iPSCs。这些iPSCs可形成拟胚体并具有向三胚层分化的潜力,为后续向生殖细胞定向分化创造了条件。
然而,从多能干细胞到功能性雄性生殖细胞,需历经PGCs诱导、减数分裂启动、单倍体精子形成等多个连续阶段。目前,家畜PSCs研究主要集中于前期阶段的定向分化,即诱导获得PGCs,而后续的减数分裂与精子发生过程鲜有文献报道,这是该领域亟待攻克的核心难点。

2 家畜多能干细胞向雄性生殖细胞分化的策略与进展

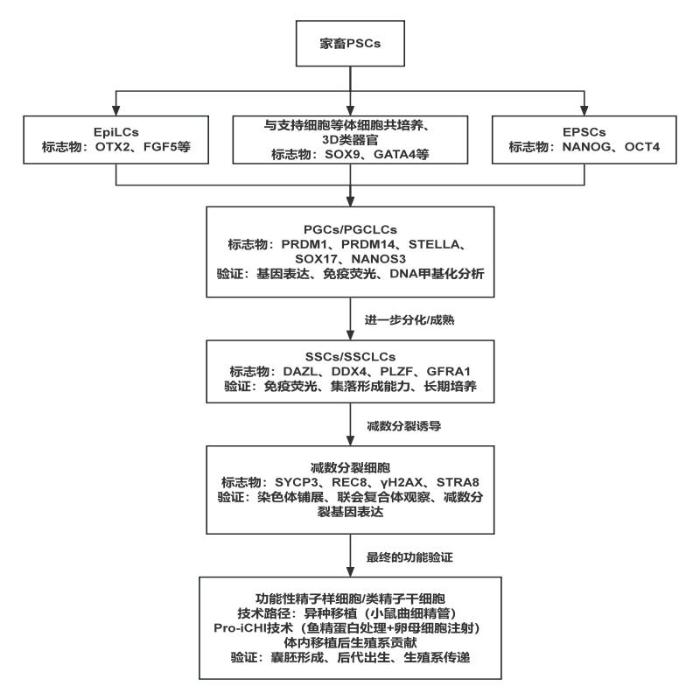
家畜多能干细胞向雄性生殖细胞定向分化需经历多个连续阶段。如图1所示,其分化轨迹以PGCLCs为中间阶段,逐步导向功能性雄性生殖细胞。目前,家畜领域的研究进展相对缓慢,定向诱导分化方法主要借鉴小鼠和人类的研究成果,可归纳为三种主要策略(表1):一是细胞因子分步诱导法,即在分化不同阶段添加特定的生长因子、激素及小分子化合物以引导细胞命运;二是共培养与微环境模拟法,即通过将PSCs与体细胞共培养,或构建模拟体内生殖腺的三维微环境,以促进GCs的分化;三是基因工程法,即通过导入关键基因定向诱导PSCs分化为GCs。
图1 家畜多能干细胞向雄性生殖细胞谱系定向分化流程图

Fig. 1 Schematic diagram of the differentiation trajectory from livestock pluripotent stem cells into male germ cell lineages

表1 三种诱导策略的原理与特点比较

Table 1 Comparison of the principles and characteristics of three induction strategies

策略

Strategies

原理

Principle

关键因子/技术

Key factors/Techniques

优势

Advantages

局限

Limitations

细胞因子分步诱导

Stepwise induction by cytokines

模拟发育信号通路,时序性调控 BMP4、RA、CHIR99021等 理论基础明确,方案相对标准化 分化效率低,难以推进至功能性精子阶段

共培养与微环境模拟

Co-culture and microenvironment simulation

重建生殖细胞-体细胞互作与空间结构

与支持细胞共培养;

3D类器官/水凝胶

提供关键旁分泌信号,促进功能成熟

体系复杂、标准化难、

成本高

转入基因法

Transgenic methods

直接操控命运决定基因

过表达SOX17等;

敲除负调控基因

精准、高效,可绕过复杂信号 技术门槛高,可能引入基因组风险

2.1 细胞因子分步诱导

这是目前实现家畜PSCs向雄性生殖细胞定向分化的主流且理论基础最明确的策略,通过在不同发育阶段添加特定的生长因子、激素及小分子化合物,实现分化进程的定向引导,其核心是再现PGCs特化与减数分裂启动两个关键生物学事件。该体系通常在基础培养基中进行,所添加的调控因子可分为三类:生长因子、激素及小分子化合物。

2.1.1 BMP信号诱导原始生殖细胞形成

BMP家族(尤其是BMP4)是诱导家畜PSCs向PGCs分化的核心驱动力。PGCs作为生殖细胞的过渡阶段,最终经减数分裂发育为精子,完成向雄性生殖细胞谱系的成熟。BMP4可激活生殖细胞命运决定相关基因(如BLIMP1、SOX17等),显著推动PSCs向PGCs的分化。在体外诱导研究中,通过模拟体内信号环境,可从多能干细胞获得PGCLCs,其在关键基因表达(如SOX17、BLIMP1、NANOS3)及转录组特征上高度模拟体内真实PGCs,是研究生殖细胞早期发育的重要体外模型。尽管PGCLCs在表观遗传重编程的完整性、基因组印记擦除效率及减数分裂启动能力等方面与体内真实PGCs尚存差距,但其进一步分化的潜力已获初步证实。研究表明,在适宜培养条件下(如调控BMP信号),PGCLCs可进一步分化为表达DAZL、DDX4的生殖细胞,甚至向前精原细胞样细胞阶段推进,为体外重建完整精子发生过程提供了可能[27]。
在小鼠模型中,BMP在PGCs特化中的核心作用与分子机制已被经典研究阐明[28]。在人类PSCs中,BMP4诱导产生的PGCLCs高表达SOX17,而SOX17已被证明是人类PGCs特化的关键调控因子[29]。经BMP4等因子的长期诱导,人类iPSCs来源的PGCLCs可分化为前精原细胞样细胞[30]。BMP4成功诱导小鼠以及人类的多能干细胞向着PGCs进行分化,这为探索家畜生殖细胞体外发生提供了重要的理论依据。但是这一机制能否直接在大型家畜上应用,还存在着关键挑战。有研究发现,尽管BMP4信号通路自身在哺乳动物中高度保守,但它下游的转录调控网络存在着明显的物种差异。在小鼠PGCs进行特化的过程中起到主要作用的是BLIMP1与PRDM14[27],而人类PGCs特化是依靠SOX17[31]。这表明直接套用小鼠或人的诱导方案,很难精准驱动家畜PSCs完成向PGCs的命运决定,这也是大型家畜PGCLC诱导研究进展比较缓慢的关键原因。
尽管如此,科学家们仍充分利用BMP4信号的保守性,将其作为诱导家畜PGCs分化的核心推动力量。2016年,Wang等[32]研究显示,BMP4在驱动猪iPSCs向生殖细胞谱系分化中的关键作用。该团队所构建的分步诱导方案中,BMP4被证明是启动PGCLCs分化的核心信号分子。研究人员先将猪iPSCs诱导为外胚层样细胞,随后将ELCs置于含BMP4的特定培养基中进行三维培养。结果显示添加BMP4之后明显推动了PGCLCs的形成,细胞在4d内迅速聚集形成紧密团簇,并同步上调多个生殖细胞关键标志基因的表达,包括PRDM1、PRDM14和STELLA。
值得注意的是,SOX17这个在人源PGCs中起决定性作用的基因在猪PGCLCs中也明显地出现上调情况,表明BMP4信号在不同物种间或许是通过保守的分子机制调控生殖细胞特化,并且它下游转录调控网络存在明显的物种差异。从功能机制层面看,BMP4的加入不只是启动了GCs的基因表达程序,还引发了相应的表观遗传重塑。诱导产生的PGCLCs表现出H3K9ME2组蛋白修饰水平降低以及印记基因启动子区DNA去甲基化等特征,这些变化与体内PGCs的早期重编程事件高度一致,进一步证实BMP4信号能够启动生殖细胞特化的完整分子程序。这证明BMP4在猪模型中与小鼠、人等其他哺乳动物一样,是高效启动生殖细胞谱系分化的关键的细胞因子。

2.1.2 视黄酸诱导减数分裂启动

视黄酸(Retinoic acid, RA)是调控生殖细胞发育,特别是启动减数分裂进程的核心信号分子之一,也是体外诱导多能干细胞向生殖细胞谱系分化的常用激素诱导剂[33]。在生殖细胞诱导过程中,RA通过激活一系列生殖细胞特异性基因(如DAZL、STRA8、C-KIT等),推动PSCs向PGCLCs分化,并进一步促使其向SSCs发育[34]。从分子机制来看,RA启动减数分裂的关键在于它下游靶基因STRA8被激活。STRA8的启动子区域含有典型的RA反应元件,可被RA-RAR/RXR复合物直接识别并激活转录[35]。在小鼠体内,STRA8与其分子伴侣MEIOSIN协同作用,推动减数分裂相关基因的表达,使生精细胞从有丝分裂进入减数分裂[36]。
此外,有研究进一步证实,RA可直接对体外培养的SSCs产生作用,使得其表达减数分裂特异性标志物SCP3,从而启动减数分裂的分子程序[37]。早在2004年,Geijsen等[38]研究就证实,经RA处理的胚胎干细胞拟胚体可产生PGCs,这些细胞能进一步发育为精子,但其后续发育命运还没有被探究。2010年,Dong等[39]研究发现,RA可诱导胎牛雄性生殖细胞在体外分化为类似精子的细胞。经RA处理并培养后,部分细胞呈现细长形态,同时表达单倍体特征及精子标志基因。将这些细胞注入成年牛卵母细胞后,约23.1%的卵母细胞发生卵裂,但不能够再进一步发育为胚胎。这表明RA诱导获得的类精子细胞具有一定的受精启动潜能,但功能尚未完全成熟。Malaver-Ortega等[40]研究显示,当牛iPSCs处于拟胚体培养体系当中的时候,BMP4和RA可各自将牛VASA同源基因阳性细胞比例提升约10倍,虽然二者一同使用没有出现协同增强的效果,但可通过BMP4和RA诱导,分化并表达生殖细胞标志基因VASA,从而在更早的分化阶段实现了PGCLCs的定向诱导,该研究为牛生殖细胞体外分化提供了可定量的报告工具,并证实BMP4和RA均能有效促进牛iPSCs向生殖细胞谱系进行分化。
除此之外,在对家畜生殖细胞进行体外诱导的体系当中,RA的浓度调控至关重要,过量使用易引发细胞凋亡,因此需对其剂量进行精细优化。Shah等[41]在水牛ESCs向生殖细胞分化的研究中发现RA功能具有明显的浓度依赖特性,并初步阐明它的表观遗传调控机制。该研究显示高浓度RA(16 μmol/L)能明显激活PGCs特性及减数分裂相关基因的表达,对早期生殖细胞谱系的构建起到作用;而低浓度RA(2 μmol/L)则更倾向于诱导成熟生殖细胞标志基因(如TEKT1、GDF9、ZP2)的表达,推动细胞向更晚期状态分化。RA可能通过调控去甲基化等相关表观遗传通路,差异性地影响关键基因的染色质状态,从而实现对生殖细胞不同发育阶段的精准调控。

2.1.3 小分子化合物优化细胞多能性状态

高效诱导生殖系细胞的关键前提在于对多能干细胞的状态进行优化。研究人员使用MEK抑制剂(如PD0325901)、GSK3β抑制剂(如CHIR99021)和WNT信号抑制剂(如IWR-1-endo)等小分子化合物,通过抑制分化信号通路,使PSCs维持或重置到一种更原始、均质且具有高分化潜能的状态。该状态被认为更接近体内着床前胚胎的上胚层细胞,从而极大提高了干细胞响应后续生殖细胞诱导信号的能力。2019年,Gao等[15]通过使用含有MEK/GSK3β抑制剂的培养体系,成功构建出具有高分化潜能的状态特性的猪EPSCs。研究进一步证实,瞬时表达关键转录因子SOX17可有效诱导拟胚体中出现NANOS3阳性细胞群,且该细胞群已表达早期PGCs标志基因TFAP2C,验证了其向生殖系分化的潜力。Yang等[42]则是利用含CHIR99021和IWR-1-endo的FACE培养基,成功建立了具有形成态多能性特征的羊孤雄单倍体胚胎干细胞,该类细胞在体外和体内均可分化为三胚层。该研究尝试将孤雄单倍体胚胎干细胞向PGCLCs诱导,但未能获得具有生殖系特化能力的PGCLCs,这表明羊生殖细胞体外诱导可能面临更大的物种特异性障碍。
综上所述,细胞因子分步诱导策略具有理论基础明确、操作体系成熟、物种普适性较高等优势(表2),是目前家畜PSCs向雄性生殖细胞分化的主要方法。但是此策略存在分化效率偏低、难以获得功能性单倍体精子等核心挑战,比较适合用于生殖细胞早期发育阶段(如PGCLCs诱导)的研究,而对于减数分裂及精子成熟等后期阶段,需联合其他策略再进一步去探究。
表2 三种诱导策略在家畜中的代表成果与验证

Table 2 The representative results and verification of three induction strategies in livestock

策略Strategies 应用示例Application examples 关键标志物Key markers 验证水平Verification level

细胞因子分步诱导

Stepwise induction by cytokines

猪PGCLCs诱导[30]

牛减数分裂启动[37]

PRDM1、PRDM14、STELLA、DAZL、DDX4、SYCP3、REC8

基因表达:RT-qPCR/RNA-seq

蛋白表达:免疫荧光/Western blot

减数分裂启动:染色体铺展观察SYCP3丝状结构

共培养与微环境模拟

Co-culture and microenvironment simulation

牛PGCLCs高效诱导与分选[47]

猪SSCs与支持细胞共培养[43]

DDX4、DAZL、SYCP3、γH2AX、GATA4、SOX9

基因表达:RT-qPCR/RNA-seq

蛋白表达:免疫荧光共定位

减数分裂结构:染色体铺展

功能互作:SSCs集落形成

转入基因法

Transgenic methods

猪EPSCs高效诱导PGCLCs[15] PRDM1、SOX17、TFAP2C、NANOS3、DAZL、NANOG、OCT4

基因表达:RT-qPCR/RNA-seq

蛋白表达:免疫荧光/Western blot

发育潜能:嵌合体形成

功能验证:体内移植后生殖系贡献

注: PRDM1、PRDM14、STELLA、SOX17、TFAP2C为早期PGCs标志物;DAZL、DDX4、NANOS3为生殖细胞谱系标志物;SYCP3、γH2AX、REC8为减数分裂标志物;GATA4、SOX9为体细胞互作标志物;NANOG、OCT4为多能性维持标志。

Note: PRDM1, PRDM14, STELLA, SOX17 and TFAP2 C are early PGCs markers; dAZL, DDX4 and NANOS3 were markers of germ cell lineage. SYCP3, γH2AX and REC8 were meiotic markers. GATA4 and SOX9 are markers of somatic cell interaction; nANOG and OCT4 are markers of pluripotency maintenance.

2.2 共培养与微环境模拟

通过构建类似于体内生殖腺的微环境,利用体细胞旁分泌信号或三维结构来支撑,以此提高PSCs向雄性生殖细胞分化的成熟度和功能性,核心在于模拟生殖细胞-体细胞互作的体内场景。

2.2.1 与生殖相关体细胞共培养

体外诱导功能性生殖细胞面临的主要挑战在于其体内发育微环境的复杂性,具体机制尚未完全阐明。为模拟体内性腺微环境,与生殖相关体细胞共培养已成为实现生殖细胞体外成熟的关键办法。该策略最早由Hayashi团队[43]在2012年建立:将小鼠ESCs和iPSCs在体外诱导为PGCLCs,随后与雄性小鼠的性腺体细胞共同培养来重新构建性腺环境,最后通过体内移植使PGCLCs分化为具有功能的精子细胞,从而证实了体外诱导的GCs具备完整发育潜能。在此基础上,Zhou等[44]进一步对共培养体系进行优化,实现了体外环境下的减数分裂,这项研究将小鼠PGCLCs与睾丸细胞悬液混合,放置在含有RA和BMP4等因子的培养基中形成混合细胞群,随后通过添加睾酮、牛垂体提取物及卵泡刺激激素等激素组合,成功诱导该细胞群完成减数分裂并形成类似精子的细胞。这标志着生殖细胞体外发生学研究达成了从依赖体内移植向体外诱导的重要突破。
在小鼠模型中成功构建的共培养策略,为探索家畜生殖细胞体外分化提供了重要借鉴。但该策略在家畜PSCs向雄性生殖细胞分化研究中的应用仍处于起步阶段(表2),有研究表明该策略能够应用在家畜SSCs的体外维持上,将猪SSCs与支持细胞一起进行培养,再配合猪源细胞外基质等优化条件,可有效维持PLZF、GFRA1等多能性标志物的表达[45]。2026年,Zhang等[46]通过牛睾丸发育的单细胞图谱研究发现,作为精子发生的结构性支架的支持细胞,它的功能不是均一的。支持细胞被划分为三个连续的成熟阶段,并分别通过TGF-β/AMPK、MAPK/Hippo及IL6/LIFR信号通路,在精原干细胞分化、减数分裂启动及精子变形等不同阶段给予精准的阶段性支持。这表明在体外构建共培养微环境时,模拟支持细胞的阶段性功能变化是促进多能干细胞定向分化为功能性雄性生殖细胞的关键要素之一。不过将PSCs来源的生殖细胞与生殖相关体细胞共培养以从而促使它们进一步成熟的报道较为有限。未来还需系统优化家畜以及生殖相关体细胞的分离与培养方法,去探究异种或同种性腺体细胞共培养体系的可行性,以推动共培养策略在家畜生殖细胞体外成熟中应用的研究。

2.2.2 三维(3D)培养体系模拟

类器官、细胞聚集体等三维培养体系,能够在体外重现体内细胞间的空间相互作用关系,模拟体内真实的微环境,从而推动PSCs的诱导分化以及减数分裂启动等生物发育进程。目前构建三维微环境主要存在两种体系途径,一种是支架材料介导的3D培养体系。使用胶原或海藻酸盐水凝胶,构建出孔径可控的三维骨架,最大程度模拟体内性腺真实环境与结构[47]。另一种则是不需要支架,借助悬滴培养、微流控芯片等技术,使细胞自组装为聚集体,模拟性腺内细胞之间的空间分布以及相互作用关系[48]。2024年,Hayashi团队利用三维培养体系在牛PSCs与生殖细胞体外诱导方面取得重要成果,该研究发现,用RHO信号抑制剂处理早期牛胚胎,能够明显使上胚层细胞数量增多,很大程度提升牛ESCs的建系效率;并且该团队基于此高效体系,建立了标准化的两步诱导方案:首先通过含BMP4及WNT信号激活剂(CHIR99021)与拮抗剂(IWR1)的培养基,使ESCs获得生殖分化潜能;在三维悬浮培养体系中,联合BMP4、SCF等关键因子,成功诱导出表达BLIMP1、TFAP2C、SOX17等核心标志物的PGCLCs。值得注意的是该研究首次鉴定出KIT⁺/CD44⁻表面标志物组合,能够在不依靠遗传报告系统的情况下实现牛PGCLCs分选[49]。该成果不仅解决了牛干细胞建系与早期生殖细胞诱导中的效率问题,还为在牛等大家畜中实现体外配子发生、深入研究生殖发育机制奠定了关键的细胞与技术基础。
与传统二维培养相比,3D体系能更好模拟体内微环境,能够增强细胞间的相互作用,有效启动减数分裂,但该技术目前还处在探索阶段,存在生物材料物种适配性差、培养条件优化复杂、成本较高等问题,在主要家畜中还没有实现规模化的研究。总体来看该策略通过重建细胞之间的相互作用及三维空间结构,能够有效提供关键旁分泌信号,促进生殖细胞的功能成熟以及减数分裂启动,适用于模拟生殖细胞发育后期阶段,填补细胞因子诱导在功能性成熟方面的不足。但是该体系复杂、标准化程度低、成本高,目前更适合作为补充策略,在基础研究中去探索生殖细胞与性腺微环境的互作机制。

2.3 转入基因法

转入基因法通过直接操控SOX17、STRA8等生殖细胞分化的核心调控基因,驱动家畜多能干细胞向雄性生殖细胞定向分化。其核心策略可分为关键转录因子过表达与信号通路抑制基因敲除两类,前者直接启动生殖细胞分化程序,后者通过解除内源性抑制信号间接推动分化进程。

2.3.1 关键转录因子过表达

生殖细胞特异性转录因子(如SOX17)是PGC特化的核心调控因子,可绕过复杂的信号级联反应,直接启动生殖细胞分化程序[50]。
在家畜研究中,猪是重要模型。Surani团队[51]的研究表明猪的PGCs在原肠胚早期已进行了特化,并揭示了SOX17与BLIMP1的时序性表达模式,证实了SOX17是猪PGCs特化的关键起始因子。2019年,Gao等[15]研究利用表达NANOS3-H2B-mCherry报告基因的猪EPSCs,在瞬时过表达SOX17并结合BMP4诱导后,成功得到猪PGCLCs。流式细胞检测显示,实验组mCherry阳性细胞比例高达42.3%,远远高于仅用BMP4诱导的对照组(14.8%)。免疫荧光分析进一步证实,该阳性细胞群共表达SOX17、OCT4、NANOG、BLIMP1及TFAP2C等PGCs的核心标志物。这表明SOX17过表达联合BMP4诱导是提升猪ESCs向PGCLCs分化效率的有效策略。

2.3.2 信号通路抑制基因敲除

该策略的核心逻辑是在家畜PSCs的内环境中存在部分具有阻滞分化效应的信号通路,该通路通过持续激活下游抑制性靶基因,维持细胞的多能性状态且阻止细胞向雄性生殖细胞谱系定向分化。采用基因编辑技术对这些通路中的核心调控基因进行特异性敲除,可打破内源性抑制的阻碍,使细胞分化程序向生殖细胞方向偏移,进而提升诱导效率与精准度。
TGF-β信号通路是生殖细胞分化进程中的重要负调控通路,要是异常激活会使生殖细胞停留在初始状态,阻碍减数分裂启动等关键过程。北京大学第三医院团队[52]研究发现,TGF-β通路过度激活会使生殖细胞分化相关基因的表达明显下调,如减数分裂相关基因DAZL、PIWIL2等表达就会下调,导致生殖细胞发育出现阻滞,而通过抑制TGF-β通路可有效解除这一阻滞,促进生殖细胞分化。此机制在哺乳动物中具有高度保守性,在牛、羊等家畜中同样适用。所以利用基因编辑技术(CRISPR-Cas9)敲除家畜PSCsTGF-β通路核心基因,来抑制TGF-β信号,这样一来或许能够提高PGCs的诱导效率,成为一个合理并且值得去探究的研究方向。
此策略通过过表达SOX17等这样的关键转录因子或敲除负调控基因,可绕开复杂的信号诱导过程,实现精准的定向诱导,展现了巨大的应用潜力。猪EPSCs中高效诱导PGCLCs的研究,已初步证实该策略的可行性。不过这项技术门槛比较高,或许会带来基因组整合的风险,而且需要针对不同的物种去筛选合适的关键转录因子,更适合用来做机制验证以及高效诱导体系的构建。

3 讨论

家畜PSCs在体外进行定向诱导分化成为具有功能性的雄性生殖细胞,是连接干细胞生物学与动物育种实践的前沿交叉领域,对突破传统育种瓶颈、实现精准遗传改良具有革命性意义。本综述对该领域里的关键方法学进展进行了系统的梳理,而且围绕着它所面临的主要挑战以及未来的发展方向展开了深入的探讨。
与小鼠和人类研究不同,家畜多能干细胞向雄性生殖细胞的分化研究具有独特意义。在科研层面,家畜在胚胎发育、生理构造及器官大小等方面与人类更为接近,是研究生殖发育、胎盘形成及开展医学研究的理想大动物模型,能够有效填补小鼠与人类之间的物种空缺。在应用层面,该研究直接服务于畜牧业生产,通过在体外高效获取功能性雄性生殖细胞,可突破传统育种中世代间隔长、优良遗传资源扩繁效率低的限制,为优良种畜的快速扩繁、稀有品种保护及精准遗传改良提供新策略。因此,建立适用于家畜的高效、稳定的多能干细胞诱导分化体系,具有重要的科学价值与应用前景。
当前,家畜PSCs向雄性生殖细胞的分化主要有三种策略,一是细胞因子分步诱导策略,该策略模拟体内胚胎发育信号分子的动态变化,引导PSCs经EpiLC阶段分化为PGCLCs,并在猪等大动物上得到了验证,效率取得了显著提升。二是共培养与微环境模拟,主要是通过将干细胞和与生殖相关的体细胞共培养,或者借助类器官,在体外重现生殖细胞-体细胞空间分布与互作关系,推动减数分裂在体外的启动。三是转入基因法,即通过导入关键转录因子使其过表达,或者抑制负调控基因,从而精确调控细胞分化路径,展现了巨大的应用潜力。上述策略各具优势(表1),共同构成了当前诱导体系的方法学基础。
虽然这三种策略在家畜研究中取得重要进展,但从PSCs获得的早期生殖细胞(如PGCLCs)向功能性配子的跨越还是存在着多重阻碍。当前,该领域亟须攻克以下关键科学问题与技术瓶颈:
减数分裂启动的分子机制尚未在体外环境中成功重建,导致分化效率低下,多数研究仍停滞于PGCs或PGCLCs阶段,这是当前面临的核心障碍之一。其根源在于,减数分裂的启动依赖染色质轴的正常组装与同源染色体的精准配对,而这一过程由黏连蛋白复合体的特定亚基(如REC8)所介导。最新研究发现,这些亚基在时空表达上的异常会阻滞减数分裂的早期进程,提示体外诱导的PGCLCs可能未能正确激活或维持该复合体的组装[53]。针对这一问题,未来可通过调控减数分裂特异性转录因子的表达,促进黏连蛋白复合体的正确组装。
表观遗传重编程的完整性不足也是重要制约因素。体内PGCs在迁移过程中经历全局DNA甲基化擦除及组蛋白修饰重塑,而体外获得的PGCLCs经常处在部分重编程状态,DNA去甲基化不彻底,不能够满足减数分裂启动所需要的表观遗传条件[54]。因此借助添加表观修饰酶抑制剂,让PGCLCs实现表观遗传的重置,解决完整性不足的问题。另外体外进行培养的体系很难完全再现体内的微环境情况,这也会影响PGCs的继续分化发育[55],可以借助胚胎互补技术,将PGCLCs移植到内源性生殖细胞缺失的受体睾丸中,依靠体内微环境推动其完成减数分裂。
物种特异性的调控网络差异,使得现有诱导方案难以在不同物种间实现通用[56]。小鼠、人类以及家畜在生殖细胞发育的关键转录因子方面存在明显不同:小鼠PGCs特化依靠BLIMP1与PRDM14,人类则是以SOX17为核心,而猪表现出BLIMP1和SOX17共同表达的中间状态模式。这表明直接套用小鼠或人类的诱导方案,很难在家畜中实现PSCs向PGCs的精准定向分化[51]。因此,需要深入探究家畜特有的生殖细胞发育调控网络,构建起物种专属的诱导体系。
此外,体外诱导生殖细胞的功能验证尚未有统一的金标准,未来需构建体内嵌合验证平台,以此作为功能评估的黄金标准。

4 结语

本文对于家畜多能干细胞向雄性生殖细胞进行定向分化的三种主要诱导策略以及它在猪、牛、羊上的研究进展展开系统的论述。尽管三种策略都已在标志物层面实现了早期生殖细胞样细胞的获取,但当下还是存在分化效率低,表观重编程不完整,物种特异性调控机制不清楚等关键性难题,距离在体外稳定获取功能性配子仍有巨大差距。未来需着重解析物种所特有的减数分裂启动的机制,构建物种专门的诱导体系,同时结合类器官和体内嵌合的技术来推动功能方面的验证。随着类器官、基因编辑以及胚胎互补等技术相互融合发展,干细胞育种有望从实验室走向牧场,为畜牧业精准遗传改良以及可持续发展提供新的技术途径。
[1]
GEORGES M, CHARLIER C, HAYES B. Harnessing genomic information for livestock improvement[J]. Nature Reviews Genetics, 2019, 20(3): 135-156.

[2]
KUMAR D, TALLURI T R, SELOKAR N L, et al. Perspectives of pluripotent stem cells in livestock[J]. World Journal of Stem Cells, 2021, 13(1): 1-29.

[3]
BOTIGELLI R C, GUILTINAN C, ARCANJO R B, et al. In vitro gametogenesis from embryonic stem cells in livestock species: recent advances, opportunities, and challenges to overcome[J]. Journal of Animal Science, 2023, 101: skad137.

[4]
CHITNIS M S, GAO X, MARLENA J, et al. The mechanical journey of primordial germ cells[J]. American Journal of Physiology Cell Physiology, 2024, 327(6): C1532-C1545.

[5]
LIU W, DU L, LI J J, et al. Microenvironment of spermatogonial stem cells: a key factor in the regulation of spermatogenesis[J]. Stem Cell Research & Therapy, 2024, 15(1): 294.

[6]
胡智超, 陈慧芳, 蔡健锋, 等. 生殖细胞系建立的研究进展与应用[J]. 中国细胞生物学学报, 2021, 43(9): 1901-1910.

HU Z C, CHEN H F, CAI J F, et al. Research progress and application of germ cell line establishment[J]. Chinese Journal of Cell Biology, 2021, 43(9): 1901-1910.

[7]
STUKENBORG J B, KJARTANSDÓTTIR K R, REDA A, et al. Male germ cell development in humans[J]. Hormone Research in Paediatrics, 2014, 81(1): 2-12.

[8]
WU J, PLATERO-LUENGO A, SAKURAI M, et al. Interspecies chimerism with mammalian pluripotent stem cells[J]. Cell, 2017, 168(3): 473-486.e15.

[9]
EVANS M J, KAUFMAN M H. Establishment in culture of pluripotential cells from mouse embryos[J]. Nature, 1981, 292(5819): 154-156.

[10]
MARTIN G R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells[J]. Proceedings of the National Academy of Sciences of the United States of America, 1981, 78(12): 7634-7638.

[11]
NOTARIANNI E, LAURIE S, MOOR R M, et al. Maintenance and differentiation in culture of pluripotential embryonic cell lines from pig blastocysts[J]. Journal of Reproduction and Fertility Supplement, 1990, 41: 51-56.

[12]
BOGLIOTTI Y S, WU J, VILARINO M, et al. Efficient derivation of stable primed pluripotent embryonic stem cells from bovine blastocysts[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(9): 2090-2095.

[13]
ZHAO L X, GAO X F, ZHENG Y X, et al. Establishment of bovine expanded potential stem cells[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(15): e2018505118.

[14]
CHEN L, WANG F R, HE J L, et al. A feeder-free culture system supports long-term expansion and germline competence of bovine formative embryonic stem cells[J]. Biology of Reproduction, 2026: ioag089.

[15]
GAO X F, NOWAK-IMIALEK M, CHEN X, et al. Establishment of porcine and human expanded potential stem cells[J]. Nature Cell Biology, 2019, 21(6): 687-699.

[16]
YANG J, RYAN D J, WANG W, et al. Establishment of mouse expanded potential stem cells[J]. Nature, 2017, 550(7676): 393-397.

[17]
ZHI M L, ZHANG J Y, TANG Q Z, et al. Generation and characterization of stable pig pregastrulation epiblast stem cell lines[J]. Cell Research, 2022, 32(4): 383-400.

[18]
MATIUKHOVA M, RYAPOLOVA A, ANDRIIANOV V, et al. A comprehensive analysis of induced pluripotent stem cell (iPSC) production and applications[J]. Frontiers in Cell and Developmental Biology, 2025, 13: 1593207.

[19]
TAKAHASHI K, YAMANAKA S. Induction of pluripotent stem cells from mouse embryonic and adult fibroblast cultures by defined factors[J]. Cell, 2006, 126(4): 663-676.

[20]
ZHOU X Y, GAO C, ZHAO W X, et al. Advances in the study of pluripotent stem cells in livestock[J]. Cell Proliferation, 2025, 58(8): e70008.

[21]
ESTEBAN M A, XU J Y, YANG J Y, et al. Generation of induced pluripotent stem cell lines from Tibetan miniature pig[J]. The Journal of Biological Chemistry, 2009, 284(26): 17634-17640.

[22]
WU Z, CHEN J J, REN J T, et al. Generation of pig induced pluripotent stem cells with a drug-inducible system[J]. Journal of Molecular Cell Biology, 2009, 1(1): 46-54.

[23]
ZHU Q Q, WANG F C, GAO D F, et al. Generation of stable integration-free pig induced pluripotent stem cells under chemically defined culture condition[J]. Cell Proliferation, 2023, 56(11): e13487.

[24]
JIANG Y, CAI N N, AN X L, et al. Naïve-like conversion of bovine induced pluripotent stem cells from sertoli cells[J]. Theriogenology, 2023, 196: 68-78.

[25]
XIANG J Z, WANG H N, ZHANG Y Y, et al. LCDM medium supports the derivation of bovine extended pluripotent stem cells with embryonic and extraembryonic potency in bovine–mouse chimeras from iPSCs and bovine fetal fibroblasts[J]. The FEBS Journal, 2021, 288(14): 4394-4411.

[26]
QIN J, LI J L, QIN S, et al. Establishment of sheep induced pluripotent stem cells using sheep-derived reprogramming factors and exploration of pluripotency maintenance mechanisms via RNA-seq analysis[J]. Journal of Integrative Agriculture, 2025.

[27]
YU H L, WANG Z Q, MA J Y, et al. The establishment and regulation of human germ cell lineage[J]. Stem Cell Research & Therapy, 2025, 16(1): 139.

[28]
OHINATA Y, OHTA H, SHIGETA M, et al. A signaling principle for the specification of the germ cell lineage in mice[J]. Cell, 2009, 137(3): 571-584.

[29]
IRIE N, KOBAYASHI T, AZIM SURANI M. Human primordial germ cell-like cell induction from pluripotent stem cells by SOX17 and PRDM1 expression[M]//BARCHI M, DE FELICI M. Germ Cell Development: Methods and Protocols. New York, NY: Springer US, 2024: 87-97.

[30]
SHAH S M, CHAUHAN M S. Inducible differentiation of buffalo (Bubalus bubalis) embryonic stem cells towards male and female germ cell-like lineages under ex vivo BMP4-mediated stimulation[J]. Reproductive Biology, 2025, 25(4): 101084.

[31]
TANG W W C, CASTILLO-VENZOR A, GRUHN W H, et al. Sequential enhancer state remodelling defines human germline competence and specification[J]. Nature Cell Biology, 2022, 24(4): 448-460.

[32]
WANG H N, XIANG J Z, ZHANG W, et al. Induction of germ cell-like cells from porcine induced pluripotent stem cells[J]. Scientific Reports, 2016, 6: 27256.

[33]
ZHANG X Y, WANG N. Induction of meiotic initiation in long-term mouse spermatogonial stem cells under retinoid acid and nutrient restriction conditions[J]. Methods in Molecular Biology, 2024, 2770: 113-121.

[34]
JOHNSON T A, NIEDENBERGER B A, KIRSANOV O, et al. Differential responsiveness of spermatogonia to retinoic acid dictates precocious differentiation but not meiotic entry during steady-state spermatogenesis[J]. Biology of Reproduction, 2023, 108(5): 822-836.

[35]
FENG C W, BURNET G, SPILLER C M, et al. Identification of regulatory elements required for Stra8 expression in fetal ovarian germ cells of the mouse[J]. Development, 2021, 148(5): dev194977.

[36]
ISHIGURO K I, MATSUURA K, TANI N, et al. MEIOSIN directs the switch from mitosis to meiosis in mammalian germ cells[J]. Developmental Cell, 2020, 52(4): 429-445.e10.

[37]
王园, 李名友, 白孝明, 等. 视黄酸信号通路在青鳉精原干细胞体外增殖与分化中的作用[J]. 水产学报, 2023, 47(7): 38-47.

WANG Y, LI M Y, BAI X M, et al. Role of retinoic acid signaling in the proliferation and differentiation of medaka(Oryzias latipes) spermatogonial stem cells in vitro [J]. Journal of Fisheries of China, 2023, 47(7): 38-47.

[38]
GEIJSEN N, HOROSCHAK M, KIM K, et al. Derivation of embryonic germ cells and male gametes from embryonic stem cells[J]. Nature, 2004, 427(6970): 148-154.

[39]
DONG W Z, HUA J L, SHEN W Z, et al. In vitro production of haploid sperm cells from male germ cells of foetal cattle[J]. Animal Reproduction Science, 2010, 118(2/3/4): 103-109.

[40]
MALAVER-ORTEGA L F, SUMER H, JAIN K, et al. Bone morphogenetic protein 4 and retinoic acid trigger bovine VASA homolog expression in differentiating bovine induced pluripotent stem cells[J]. Molecular Reproduction and Development, 2016, 83(2): 149-161.

[41]
SHAH S M, SINGLA S K, PALTA P, et al. Retinoic acid induces differentiation of buffalo (Bubalus bubalis) embryonic stem cells into germ cells[J]. Gene, 2017, 626: 358-366.

[42]
YANG L, DI A Q, SONG L S, et al. Generation of modified cows and sheep from spermatid-like haploid embryonic stem cells[J]. Nature Biotechnology, 2025: 1-9.

[43]
HAYASHI K, OGUSHI S, KURIMOTO K, et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice[J]. Science, 2012, 338(6109): 971-975.

[44]
ZHOU Q, WANG M, YUAN Y, et al. Complete meiosis from embryonic stem cell-derived germ cells in vitro [J]. Cell Stem Cell, 2016, 18(3): 330-340.

[45]
KIM D, HAN M G, JEON Y, et al. Effect of extracellular matrix derived from porcine tissue on stemness of porcine spermatogonial stem cells[J]. International Journal of Molecular Sciences, 2025, 26(20): 9937.

[46]
ZHANG J M, QI X, ZHAO W X, et al. Depicting the dynamic transcriptional and epigenetic landscape of testis development in pubertal Simmental cattle[J]. Journal of Animal Science and Biotechnology, 2026, 17: 96.

[47]
STOPEL A, LEV C, DAHARI S, et al. Towards a “testis in a dish”: generation of mouse testicular organoids that recapitulate testis structure and expression profiles[J]. International Journal of Biological Sciences, 2024, 20(3): 1024-1041.

[48]
ABUMADIGHEM A, SHUCHAT S, LUNENFELD E, et al. Testis on a chip: a microfluidic three-dimensional culture system for the development of spermatogenesis in-vitro [J]. Biofabrication, 2022, 14(3): 035004.

[49]
SHIRASAWA A, HAYASHI M, SHONO M, et al. Efficient derivation of embryonic stem cells and primordial germ cell-like cells in cattle[J]. The Journal of Reproduction and Development, 2024, 70(2): 82-95.

[50]
HE W T, LUO Q, ZHAO J, et al. X-linked gene dosage and SOX2 act as key roadblocks for human germ cell specification in klinefelter syndrome[J]. Advanced Science, 2025, 12(15): 2410533.

[51]
KOBAYASHI T, ZHANG H X, TANG W W C, et al. Principles of early human development and germ cell program from conserved model systems[J]. Nature, 2017, 546(7658): 416-420.

[52]
LU Y J, QIN M, HE Q L, et al. How the extra X chromosome impairs the development of male fetal germ cells[J]. Nature, 2024, 635(8040): 960-968.

[53]
SMELA M P, ADAMS J, MA C, et al. Initiation of meiosis from human iPSCs under defined conditions through identification of regulatory factors[J]. Science Advances, 2025, 11(33): eadu0384.

[54]
GELL J J, LIU W, SOSA E, et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure[J]. Stem Cell Reports, 2020, 14(3): 433-446.

[55]
MCLEAN Z L, FERMIN L M, APPLEBY S J, et al. Morula complementation restores male germline in NANOS2 null sheep[J]. PNAS Nexus, 2025, 4(7): pgaf200.

[56]
PEI Y L, ZHOU R. Advances in porcine stem cell research and their applications in agriculture[J]. Frontiers in Cell and Developmental Biology, 2026, 14: 1862107.

文章导航

/

〈 〉