胚胎发育与干细胞分化调控

DLK1-DIO3印记簇在家畜胚胎发育中的研究进展

  • 鞠思含 ,
  • 朱梁 ,
  • 赵温倩 ,
  • 刘忠华 ,
  • 翁晓刚
展开
  • 东北农业大学生命科学学院,黑龙江 哈尔滨 150030
翁晓刚(1986—),男,副研究员,四川绵阳人,研究方向:猪胚胎工程技术,E-mail:。

鞠思含(2003—),女,硕士研究生,黑龙江哈尔滨人,研究方向:猪胚胎工程技术,E-mail:。

收稿日期: 2026-01-05

  网络出版日期: 2026-09-10

基金资助

国家重点研发项目(2022YFD1302203)

Research progress on the DLK1–DIO3 imprinted cluster in livestock embryonic development

  • Sihan Ju ,
  • Liang Zhu ,
  • Wenqian Zhao ,
  • Zhonghua Liu ,
  • Xiaogang Weng
Expand
  • College of Life Sciences, Northeast Agricultural University, Harbin, 150030, Heilongjiang

Received date: 2026-01-05

  Online published: 2026-09-10

摘要

印记基因是通过表观遗传机制调控的、依亲本来源而特异性表达的基因,它们往往成簇分布,是正常胚胎发育和个体健康的关键调节因子。其中DLK1-DIO3印记簇是影响家畜胚胎发育与胎盘形成的关键调控区域,其印记状态主要由父源特异性甲基化的核心印记控制区IG-DMR(印记基因差异甲基化区域)决定簇内整体亲本表达模式,GTL2-DMR(GTL2差异甲基化区域)作为次级DMR维持母源转录本稳定表达。该文综述了该基因簇的组成、印记调控模式及其功能,尤其是重点总结了父源印记基因DLK1、RTL1、DIO3和母源印记基因GTL2等在胎盘血管生成、肌肉生长、神经分化与能量代谢中的调控功能。并围绕极性超显性遗传的Callipyge(美臀)羊典型案例,揭示可通过调控该基因簇来改善家畜肉用性状和繁殖性能,以期为提升家畜生产性能与繁殖效率提供理论参考。

本文引用格式

鞠思含 , 朱梁 , 赵温倩 , 刘忠华 , 翁晓刚 . DLK1-DIO3印记簇在家畜胚胎发育中的研究进展[J]. 中国畜禽种业, 2026 , 22(9) : 95 -102 . DOI: 10.19543/j.cnki.1673-4556.20260803.001

Abstract

Imprinted genes are regulated through epigenetic mechanisms and are expressed in a parent-of-origin-specific manner. These genes are often clustered together and serve as crucial regulators in normal embryonic development and individual health. The DLK1-DIO3 imprinted cluster is a key regulatory region influencing livestock embryonic development and placental formation. The imprinting status of this cluster is primarily determined by the parent-of-origin-specific methylation of the core imprinting control region, IG-DMR(Imprinting Gene Differentially Methylated Region), which governs the overall parent-specific expression pattern of the cluster. GTL2-DMR(GTL2-Differentially Methylated Region), as a secondary DMR, maintains the stable expression of the maternal transcripts. This review summarizes the composition, imprinting regulation, and functional roles of this cluster, with a particular focus on the regulatory functions of the paternal genes DLK1, RTL1, DIO3, and the maternal gene GTL2 in placental angiogenesis, muscle growth, neural differentiation, and energy metabolism. The case of the Callipyge (CLPG) sheep, exhibiting a polar overdominant inheritance pattern, highlights the potential of manipulating this gene cluster to improve meat production traits and reproductive performance in livestock, so as to provide theoretical reference for improving the production performance and reproductive efficiency of livestock.

基因组印记是哺乳动物一种重要的表观遗传现象,指特定基因根据其亲本来源不同而呈现出单等位基因表达的现象[1]。基因组印记的建立和维持主要依赖于多种表观遗传修饰的协同作用,例如DNA甲基化与组蛋白修饰、非编码RNA等[2]。目前在人类和小鼠中已鉴定出超过200个印记基因,它们通常成簇分布在基因组某些特定区域,并由印记控制区域统一调控。基因组印记在家畜胎盘形成、胚胎发育、胎儿生长以及出生后代谢调控等生理过程中发挥关键作用。印记异常不仅会导致胎盘功能受损和胚胎发育缺陷,还与肌肉生长、脂肪代谢等多种家畜生长性状等密切相关。研究人员可通过揭示基因表达的父源与母源特异性,进而优化育种策略,提高生产性能,选育出具有优良生长性状和更高肉质的家畜。因此,该簇不仅在胚胎发育及表观遗传调控中具有重要科学价值,同时为动物育种与遗传改良提供理论依据。
DLK1-DIO3印记簇是家畜中较为保守的印记簇,其中DLK1、RTL1等基因主要从父源染色体表达,而GTL2、MEG8等非编码RNA主要从母源染色体表达,该区域基因的表达模式依赖IG-DMR等关键元件精准调控[3]。现有研究表明此基因簇对胚胎发育,尤其是胎盘形成和胚胎血管网络的构建至关重要[4-5],并且在家畜育种研究中,该基因簇序列变异已被广泛证实与肌肉生长、产奶性能等重要经济性状密切相关,多重调控作用使其成为研究印记遗传与发育调控的经典模型[6]。因此,深入研究DLK1-DIO3印记簇的调控机制并探讨其生物学功能,对开发生物育种新靶点和理解疾病机制具有重要意义。本文综述了该基因簇的研究历史、印记调控模式及其功能,重点总结了该基因簇内DLK1、GTL2、RTL1、DIO3等关键基因,并结合Callipyge(美臀)羊的典型案例,讨论了该基因簇在新品种培育中的应用潜力,系统梳理DLK1-DIO3印记簇在家畜胚胎发育中的功能及调控机制,以期为胚胎发育研究与遗传育种提供理论依据。

1 DLK1-DIO3印记簇研究历史

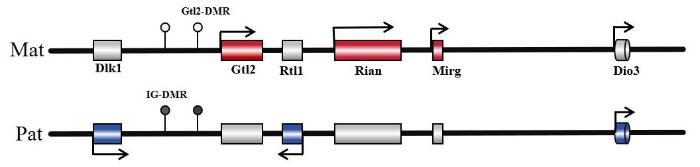
在哺乳动物基因组中,印记基因通过单等位基因表达调控着胚胎发育、胎盘形成和代谢平衡等关键生物学过程。DLK1-DIO3印记簇位于人类14号染色体和小鼠12号染色体上,其中包含父源表达的基因(如DLK1、RTL1、DIO3)和母源表达的基因(如GTL2和MEG3等)。该基因簇的调控依赖于2个关键的差异甲基化区域(IG-DMR和GTL2-DMR),这些区域负责调控该簇基因的表达。IG-DMR首次由Takada等[7]于2000年描述,研究发现它对DLK1-GTL2区域的印记调控具有重要作用。2011年,Sato等[8]研究揭示了GTL2-DMR在胚胎发育初期对GTL2的印记调控作用。鉴于DLK1-DIO3印记簇在基因表达调控中的重要性,历年来科研人员对簇内各基因进行了详细研究。图1为DLK1-DIO3印记簇模式图。
图1 DLK1-DIO3印记簇模式图

注:蓝色和红色分别为父源和母源表达基因,灰色为印记基因不表达状态。

Fig. 1 Schematic diagram of the DLK1-DIO3 imprinted cluster

Note: Blue and red represent the translation of paternally and maternally expressed genes, respectively, gray shapes represent imprinted genes with no expression.

DLK1基因于1987年首次被报道[9]。随后1988年,Fay等从正常人类胎儿羊水中分离出了抗原1(FA1)蛋白。1993年,Laborda等人从小细胞肺癌细胞系中鉴定出一种与果蝇Delta基因具有同源性的cDNA,将其命名为DLK。同年,Smas等人从小鼠前脂肪细胞系3T3-L1中克隆出一个cDNA,命名为“前脂肪因子1”(Pref-1)[10]。后续分析发现DLK、FA1和Pref-1实际上是同一基因的不同转录变体[11],当前公认名称为DLK1。此后,随着基因组印记研究的深入,DLK1被确定为父源表达的印记基因[12]。
RTL1基因最初发现是基于对印记区域和突变基因的定位分析。2001年,Charlier等[13]在分析绵羊callipyge位点序列时,首次鉴定出该基因并将其命名为PEG11。同年,研究人员在小鼠基因组中也发现了这一基因,并将其命名为RTL1[14-15]。随着研究的深入,发现RTL1基因参与调控胚胎期能量代谢[16],揭示了该基因在胚胎发育过程中的作用。
1996年,Schuster-Gossler等[17]利用基因捕获技术,在小鼠12号染色体远端识别出一个由转基因插入引起的突变(GTL2lacZ),随后于1998年从转基因整合位点鉴定出GTL2基因。该基因被确定为母源表达的非编码RNA,与DLK1紧密连锁。2001年,人们在研究绵羊callipyge位点时,鉴定出包括GTL2的多个转录本,并发现其与肌肉肥大表型密切相关[18],这些研究奠定了GTL2作为DLK1-DIO3印记簇关键调控元件的基础,揭示了其在肌肉发育过程中的重要调控作用。
1991年,研究人员首次从大鼠脑中纯化并鉴定出DIO3[19],发现其为甲状腺激素信号通路的关键负调控因子。2002年,Tsai等[20]研究表明DIO3是印记基因,主要在父源染色体上表达。后续研究发现,DIO3在胚胎发育过程中呈现动态表达模式,在胎盘、肝脏和大脑等组织中高表达[21]。近年来的研究表明,DIO3的表达失调与甲状腺疾病密切相关。

2 DLK1-DIO3印记簇内印记基因的功能

2.1 DLK1

DLK1作为父源表达的印记基因,在猪出生后仍于骨骼肌、肝脏等组织中维持表达,提示其在出生后生长调控中可能具有长期调控作用[22]。DLK1蛋白属于表皮生长因子(EGF)样蛋白家族,含有6个串联的EGF样重复序列,这些结构域使其能够与Notch受体相互作用,进而调控胚胎发育[23]。在小鼠中,DLK1通过与其他印记基因(如GTL2、MEG3等)相互作用,调节与血管生成相关的Notch信号通路,从而促进胚胎发育和胎盘中的血管形成[4]。DLK1表达失衡会导致胎盘血管发育异常,影响胎儿的营养和氧气供应。除调控血管生成外,DLK1还可通过抑制Notch信号通路来促进神经前体细胞的分化。DLK1通过与Notch受体竞争性结合,阻断Notch配体(如Delta和Jagged)对受体的激活,从而解除对神经分化的抑制[24]。因此,DLK1基因的印记状态对神经系统发育具有重要影响,父源缺失DLK1的家畜胚胎表现出神经发育迟缓、神经元数量减少等表型[25-26],这表明了DLK1印记表达对神经系统发育的重要性。

2.2 RTL1

在家畜中,RTL1的表达模式与肌肉发育的关键阶段密切相关。在肌肉发育中,RTL1主要通过调控肌卫星细胞的活性和分化发挥作用,RTL1能够通过激活mTOR信号通路促进肌卫星细胞的增殖,同时抑制其过早分化[27]。这种调控机制有利于肌肉的生长发育和损伤修复,对于确保肌肉组织中肌纤维数量的正常建立至关重要。此外,RTL1基因的反义链编码多个miRNA,这些miRNA能够靶向RTL1的mRNA,形成负反馈调控环路[28]。这种双向印记调控机制确保了RTL1表达水平的精确控制,防止其过度表达导致的肌肉发育异常。在著名的callipyge绵羊突变体中,RTL1的异常高表达导致了显著的肌肉肥大表型。这充分说明了RTL1在肌肉发育中的关键作用,也为家畜肌肉性状的遗传改良提供了重要的靶点。

2.3 GTL2

由于GTL2(MEG3)与DLK1在染色体上紧密连锁且呈现相反的印记状态,GTL2能够通过调控DLK1的表达间接影响血管发育。GTL2的表达变化会影响DLK1的表达水平,DLK1通过Notch信号通路进而调控血管生成。GTL2作为母源表达的长链非编码RNA,在家畜胚胎血管系统发育中发挥着独特的调控功能,其母源表达构成了DLK1-DIO3印记簇印记调控网络的重要一环。相关研究表明,GTL2可通过竞争性结合miRNA参与血管发育的调控,GTL2可以与特定miRNA结合后可解除这些miRNA对其靶基因的抑制作用。在家畜胚胎血管发育过程中,GTL2与miR-127、miR-370等多种miRNA相互作用,调控血管内皮生长因子信号通路的活性,对于维持血管稳态和促进血管成熟具有重要意义[29]。在延边黄牛中,lncRNA MEG3的多态性与胸宽、髋宽等多项生长体尺性状存在显著或极显著关联[30],提示该母源长链RNA不仅参与印记调控,也直接参与肉牛体型生长和肌肉发育。

2.4 DIO3

DIO3在家畜甲状腺激素代谢和内分泌系统发育中发挥着核心作用。DIO3编码III型碘甲状腺原氨酸脱碘酶,该酶是甲状腺激素代谢通路的关键负调控因子,负责将具有生物活性的甲状腺激素T4和T3分别转化为无活性的反T3(rT3)和3,3'-二碘甲状腺原氨酸(T2)[31]。在家畜胚胎发育过程中,DIO3通过在特定组织和特定发育阶段表达,精确调控局部甲状腺激素的浓度,确保胚胎发育的正常进行。在猪胚胎发育研究中,DIO3在肝脏、大脑和胎盘组织中呈现父源表达,其表达水平随妊娠阶段呈现动态变化[32]。即妊娠早期DIO3表达水平较高,有助于降低组织中甲状腺激素浓度,防止过早分化;妊娠中后期DIO3表达适当下调,甲状腺激素发挥促进组织成熟的作用。另有研究发现,DIO3基因敲除的家畜胚胎表现出甲状腺激素水平异常、生长发育迟缓以及神经系统发育缺陷等表型[33]。

3 DLK1-DIO3印记簇的印记调控模式

3.1 IG-DMR区的甲基化调控

IG-DMR是DLK1-DIO3印记簇印记调控的核心区域之一,其甲基化状态直接影响父母源基因的表达差异。近年来的研究发现,IG-DMR区域包含一个由2个功能模块组成的双元件结构,分别在母源和父源染色体上发挥特异性功能,共同保护该位点的甲基化印记免受丢失[1,34]。相关研究表明,在猪和牛等家畜中,IG-DMR区域的甲基化状态变化会直接影响DLK1和DIO3的表达,从而影响胚胎发育和胎盘功能。在克隆猪的研究中发现IG-DMR区域的甲基化丧失导致GTL2基因表达异常,进一步影响DLK1和DIO3基因的表达模式。这些结果表明正确的甲基化状态对于维持家畜DLK1-DIO3印记簇的正常印记状态至关重要。

3.2 DLK1-DIO3印记簇对Callipyge表型的调控作用

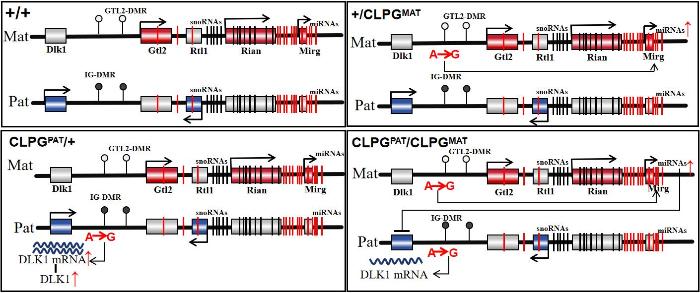
Callipyge羊以其显著的产后肌肉肥大现象而闻名,该表型具有独特的极性超显性遗传模式。Callipyge突变被定位到绵羊18号染色体的DLK1-GTL2基因簇内,位于DLK1与GTL2之间约90 kb的基因区中部(靠近IG-DMR)[35],距GTL2上游约32.8 kb(AF354168序列上的第103894个碱基),是一个高度保守12 bp基序中的单碱基替换A→G(CLPG突变),该序列作为一个肌肉特异性的长程顺式调控元件发挥作用[36]。当突变位于父源染色体时,能够显著上调邻近的父源印记基因的表达;而当其位于母源染色体时,则增强母源印记非编码RNA的表达,但不改变其印记状态。
Callipyge表型的产生涉及DLK1-DIO3印记簇内多个基因表达水平的协同调控。相关研究发现,在骨骼肌中特异性过表达DLK1的转基因小鼠表现出与Callipyge羊相似的肌肉肥大表型[37],表明DLK1是诱导Callipyge表型的主要效应因子。RTL1为另一个关键的父源表达基因,其表达模式与肌肉肥大密切相关,然而虽然RTL1在肥大肌肉中表达上调,但其单独过表达不足以诱导肌肉肥大,表明RTL1可能作为DLK1的协同因子发挥作用[38]。母源非编码RNA基因(如MEG3、MEG8等)在携带母源突变等位基因的个体中表达上调[38-39],这些转录本及其microRNA簇可能通过反式作用调控父源基因表达。例如,MEG8基因内的miR-379/miR-544簇中的miR-329能靶向DLK1 mRNA的3'UTR区域,通过转录后抑制机制调控DLK1蛋白表达[40]。在山羊背最长肌发育过程中,miR-379和miR-544等miRNA的表达呈现发育阶段特异性变化,进一步支持其在肌肉发育中的调控作用[41]。类似地,在肉牛中,microRNAs也被证实是肌肉发育的关键调控因子,影响肌纤维类型、肌肉生长和肉质性状[42-43]。在小鼠中敲除该miRNA簇会导致新生小鼠出现类似Callipyge表型的肌纤维肥大,伴随DLK1表达上调[44]。这揭示了极性超显性遗传的分子机制:父源杂合子中突变等位基因导致DLK1过度表达,而母源miRNA无法完全抑制;母源杂合子或纯合子中,过度表达的母源miRNA有效抑制DLK1表达,避免肥大表型的出现[40]。Callipyge表型调控机制总结见图2。
图2 Callipyge表型调控模式图

注:A→G:该处发生CLPG突变,由原有A碱基突变为G碱基。灰色图形为印记基因不表达状态。在CLPG表型中:CLPGPAT/+动物表现出DLK1的过度表达,导致了CLPG表型;+/CLPGMAT动物表现出母源miRNA的过度表达和父源DLK1的正常表达,这不会导致CLPG表型;在CLPGPAT/CLPGMAT动物中,父源过表达的DLK1可以被母源过表达的miRNA转录后抑制,CLPGPAT/CLPGMAT动物不会出现肥大性状。

Fig. 2 Regulatory model of the Callipyge phenotype

Note: A→G:The CLPG mutation occurs in this region, where the original adenine (A) base is mutated to guanine (G). gray shapes represent imprinted genes with no expression.In the CLPG phenotype: CLPGPAT/+ animals exhibit overexpression of DLK1 leading to the CLPG phenotype; +/CLPGMAT animals display overexpression of maternal miRNAs and normal expression of paternal DLK1, which does not result in the CLPG phenotype; in CLPGPAT/CLPGMAT animals, paternal overexpression of DLK1 is post-transcriptionally suppressed by maternal overexpression of miRNAs, will not lead to CLPG phenotype.

该表型在其他家畜中也得到了验证。研究人员在猪群体中对与绵羊Callipyge位点同源的SSC7远端区域进行QTL定位,鉴定出一个显著影响火腿重量的QTL,并显示出母源极性超显性遗传模式[45]。在牛中,利用DNA标记对多条染色体进行全基因组QTL扫描,发现多处具有亲本来源效应的生长和胴体性状QTL聚集于与DLK1-DIO3印记簇同源的区段,提示该印记调控网络在牛和羊中具有一定保守性[46]。总之,DLK1-DIO3印记簇通过精细的印记基因表达调控网络,共同决定了Callipyge表型的产生。

3.3 不同物种间调控差异

在染色体定位上,猪DLK1-DIO3印记簇位于7号染色体,牛位于21号染色体,羊位于18号染色体远端并与经典Callipyge位点共同定位。在调控方面,该簇表观遗传稳定性存在显著物种与品种差异:猪IG-DMR在体细胞核移植时易发生异常高甲基化,导致MEG3下调及DLK1/RTL1异常激活,与生长迟缓和代谢异常密切相关[47];牛DLK1-DIO3印记簇域结构与人、小鼠高度共线,多级体细胞DMR及增强子与启动子之间相互作用,共同保障胚胎发育过程中相对稳定的印记状态[1];羊则在DLK1-GTL2间顺式元件上形成Callipyge突变,产生极性超显性,仅父源杂合个体表现显著后躯肌肉肥大[48]。综合来看,猪中常表现为印记异常,与生长脂肪性状紧密相关;牛印记相对稳定更偏向繁殖和胎盘功能;羊则以单点位突变产生特殊性状,凸显物种和品种特异性。

4 DLK1-DIO3印记簇内的印记基因与家畜胎盘发育

4.1 DLK1-DIO3印记簇在家畜胎盘发育中的作用

胎盘作为连接母体与胎儿的关键器官,其发育过程涉及复杂的血管形成与营养转运调控。DLK1-DIO3印记簇,通过父源表达的蛋白编码基因(DLK1、RTL1、DIO3)与母源表达的长链非编码RNA(GTL2、MEG8等)之间的精密平衡,在家畜胎盘形态建成与功能成熟中发挥多层次调控作用。
在胎盘血管发育方面,DLK1-DIO3印记簇成员通过调控关键信号通路实现协同作用。父源表达的DLK1通过双重机制促进血管生成:一方面作为Notch信号通路的抑制因子,DLK1阻断Notch受体激活,解除其对血管分支的抑制效应,促进家畜胎盘绒毛膜血管网络密集化。母源表达的GTL2通过招募PRC2复合物介导H3K27me3修饰,抑制血管生成相关基因转录,防止血管过度分支。在猪胎盘发育中,GTL2呈现动态表达特征:妊娠早期低表达利于血管快速建立,中期表达上调促进血管成熟,后期表达至高峰以维持血管稳态[47]。在小鼠模型中,抑制母源表达的GTL2基因会导致父源表达基因(如DLK1、RTL1等)异常激活,进而引起胎盘血管发育缺陷和围产期死亡,进一步证实了GTL2在维持印记基因表达平衡和胎盘功能中的关键作用。此外,在羊胎盘中RTL1基因对促进胎盘血管生成和胎儿毛细血管维持方面至关重要,其表达水平受到miR-127的严格调控,miR-127异常表达会导致RTL1剂量失衡,进而引起胎盘血管系统破坏和功能障碍,最终导致胎儿死亡[49]。
在营养转运调控层面,DLK1-DIO3印记簇通过父源与母源等位基因的拮抗性表达调控家畜胎盘功能。羊胎盘发育中,III型脱碘酶DIO3通过调控局部甲状腺激素代谢影响胎盘营养转运功能;母体营养供应不足会导致小胎龄羊胎盘中DIO3蛋白含量降低,DIO2/DIO3比值升高,破坏了T3/rT3代谢平衡,进而干扰甲状腺激素受体THRA及下游营养转运相关蛋白的表达[50]。这些研究揭示了DLK1-DIO3印记簇在调控家畜胎盘营养转运中的核心作用。

4.2 DLK1-DIO3印记簇印记异常与家畜胎盘发育障碍

DLK1-DIO3印记簇的印记状态对胎盘发育具有决定性影响。在家畜克隆技术中,DLK1-DIO3印记簇的异常印记是导致克隆效率低下的重要原因之一。猪体细胞核移植中,IG-DMR发生异常高甲基化,母源GTL2几乎沉默,父源DLK1与DIO3过度激活,这种表达失衡导致胎盘血管发育异常、营养转运功能紊乱,最终引起胎儿生长受限甚至死亡[47]。该现象与胚胎发育阻滞、围产期死亡率升高及弱仔、断奶体重下降密切相关,已成为限制克隆猪生殖性能的重要表观遗传因素。在牛体外胚胎生产获得的大型后代综合征(Large offspring syndrome,LOS)个体中,包括DLK1-DIO3印记簇在内的印记位点普遍出现甲基化紊乱及母源GTL2相关DMR低甲基化,伴随胎儿过度生长、流产、难产及围产期死亡风险增高[51]。小鼠模型进一步表明,IG-DMR关键序列缺失或母源RNA转录丢失可导致胎盘血管异常和围产期致死,为印记异常引起流产和生长受限提供了直接证据[52]。因此,在家畜辅助生殖和育种实践中研究DLK1-DIO3印记簇的印记状态,可用于胚胎质量评估和高风险妊娠预警,对降低流产率和改善生长性能具有潜在应用价值。

5 结语

DLK1-DIO3印记簇维持了父母来源基因表达的平衡,在家畜胎儿与胎盘生长发育中发挥重要调控功能。当前DLK1-DIO3印记簇研究仍存在多方面空白与争议:例如,不同物种和组织中IG-DMR及母源lncRNA对印记维持的精确层级关系尚不清晰[53];CRISPR-dCas9等表观编辑手段[54]虽已用于精确定义IG-DMR核心CpG并稳定DLK1-DIO3印记簇的印记[42,55],但在大动物胚胎与家畜生产中仍存在脱靶风险,其跨代稳定性和性状一致性仍缺乏系统评估。鉴于家畜胎盘类型的不同,未来研究可围绕家畜中DLK1-DIO3印记簇的具体调控模式展开,深入解析该基因簇中非编码RNA尤其是miRNAs的具体靶基因和调控网络,重点研究胎盘血管结构形成、滋养层细胞分化以及胚胎早期表观遗传重编程等关键过程。后续工作还可在牛、猪、羊等物种中验证簇内长链非编码RNA和miRNA簇对胎盘与胚胎相互作用、能量代谢和胚胎生长模式的影响。基于这些认识可为提升家畜繁殖效率、改善生长性状,以及为生物育种提供靶标[56]。
[1]
WEINBERG-SHUKRON A, YOUNGSON N A, FERGUSON-SMITH A C, et al. Epigenetic control and genomic imprinting dynamics of the Dlk1-Dio3 domain[J]. Frontiers in Cell and Developmental Biology, 2023, 11: 1328806.

[2]
ALVES L F, SILVA I N DA, DE MELLO D C, et al. Epigenetic regulation of DLK1-DIO3 region in thyroid carcinoma[J]. Cells, 2024, 13(12): 1001.

[3]
VANNEVEL V, CLAES K, BAUD D, et al. Preeclampsia and long-term renal function in women who underwent kidney transplantation[J]. Obstetrics and Gynecology, 2018, 131(1): 57-62.

[4]
ZHANG X, HE H J, YU H R, et al. Maternal RNA transcription in Dlk1-Dio3 domain is critical for proper development of the mouse placental vasculature[J]. Communications Biology, 2024, 7: 363.

[5]
YU H R, ZHAO Y, CHENG R, et al. Silencing of maternally expressed RNAs in Dlk1-Dio3 domain causes fatal vascular injury in the fetal liver[J]. Cellular and Molecular Life Sciences, 2024, 81(1): 429.

[6]
HUBERT J N, PERRET M, RIQUET J, et al. Livestock species as emerging models for genomic imprinting[J]. Frontiers in Cell and Developmental Biology, 2024, 12: 1348036.

[7]
TAKADA S, TEVENDALE M, BAKER J, et al. Delta-like and Gtl2 are reciprocally expressed, differentially methylated linked imprinted genes on mouse chromosome 12[J]. Current Biology, 2000, 10(18): 1135-1138.

[8]
SATO S, YOSHIDA W, SOEJIMA H, et al. Methylation dynamics of IG-DMR and Gtl2-DMR during murine embryonic and placental development[J]. Genomics, 2011, 98(2): 120-127.

[9]
HELMAN L J, THIELE C J, LINEHAN W M, et al. Molecular markers of neuroendocrine development and evidence of environmental regulation[J]. Proceedings of the National Academy of Sciences of the United States of America, 1987, 84(8): 2336-2339.

[10]
LI M, PENG Y Q, SHI Y K, et al. Advancements in the study of DLK1 in the pathogenesis of diabetes[J]. Life Sciences, 2025, 369: 123535.

[11]
TASHIMA Y, TSUKAMOTO Y, TSUKAMOTO N, et al. Retention of DLK1 in the endoplasmic reticulum identifies roles for EGF-like-domain-specific O-glycans in the secretory pathway[J]. The FEBS Journal, 2025, 292(20): 5355-5381.

[12]
ESKICI N, GOMEZ-SANCHEZ C, MADHUSUDAN S, et al. Dual role of DLK1 in GnRH neuron ontogeny[J]. Stem Cell Reviews and Reports, 2025, 21(8): 2711-2726.

[13]
CHARLIER C, SEGERS K, WAGENAAR D, et al. Human-ovine comparative sequencing of a 250-kb imprinted domain encompassing the callipyge (clpg) locus and identification of six imprinted transcripts: DLK1, DAT, GTL2, PEG11, antiPEG11, and MEG8[J]. Genome Research, 2001, 11(5): 850-862.

[14]
ONO R, KOBAYASHI S, WAGATSUMA H, et al. A retrotransposon-derived gene, PEG10 is a novel imprinted gene located on human chromosome 7q21[J]. Genomics, 2001, 73(2): 232-237.

[15]
SHIURA H, KITAZAWA M, ISHINO F, et al. Roles of retrovirus-derived PEG10 and PEG11/RTL1 in mammalian development and evolution and their involvement in human disease[J]. Frontiers in Cell and Developmental Biology, 2023, 11: 1273638.

[16]
SHIURA H, KITAZAWA M, KANEKO-ISHINO T, et al. Placenta-driven evolution: viral gene acquisition and PEG10's essential roles in eutherian placenta[J]. Biomolecules, 2026, 16(1): 161.

[17]
SCHUSTER-GOSSLER K, SIMON-CHAZOTTES D, GUÉNET J L, et al. Gtl2lacZ, an insertional mutation on mouse Chromosome 12 with parental origin-dependent phenotype[J]. Mammalian Genome, 1996, 7(1): 20-24.

[18]
FARHADOVA S, GHOUSEIN A, CHARON F, et al. The long non-coding RNA Meg3 mediates imprinted gene expression during stem cell differentiation[J]. Nucleic Acids Research, 2024, 52(11): 6183-6200.

[19]
KAPLAN M M, YASKOSKI K A. Phenolic and tyrosyl ring deiodination of iodothyronines in rat brain homogenates[J]. The Journal of Clinical Investigation, 1980, 66(3): 551-562.

[20]
TSAI C E, LIN S P, ITO M, et al. Genomic imprinting contributes to thyroid hormone metabolism in the mouse embryo[J]. Current Biology, 2002, 12(14): 1221-1226.

[21]
TENG X Q, HE H J, YU H R, et al. LncRNAs in the Dlk1-Dio3 domain are essential for mid-embryonic heart development[J]. International Journal of Molecular Sciences, 2024, 25(15): 8184.

[22]
LI X J, YANG Y N, LI L, et al. Transcriptome profiling of different developmental stages on longissimus dorsi to identify genes underlying intramuscular fat content in wannanhua pigs[J]. Genes, 2023, 14(4): 903.

[23]
TRAUSTADÓTTIR G Á, JENSEN C H, THOMASSEN M, et al. Evidence of non-canonical NOTCH signaling: delta-like 1 homolog (DLK1) directly interacts with the NOTCH1 receptor in mammals[J]. Cellular Signalling, 2016, 28(4): 246-254.

[24]
HEJRATI N, LOU Z J, KOUHZAEI S, et al. DLK1-expressing neural progenitor cells promote tissue repair and functional recovery after cervical spinal cord injury[J]. Stem Cells Translational Medicine, 2025, 14(6): szaf014.

[25]
FERRÓN S R, CHARALAMBOUS M, RADFORD E, et al. Postnatal loss of Dlk1 imprinting in stem cells and niche astrocytes regulates neurogenesis[J]. Nature, 2011, 475(7356): 381-385.

[26]
SMITH C M, CATCHPOOLE D, HUTVAGNER G. MiRNAs from the Dlk1-Dio3 locus and miR-224/452 cluster contribute to glioblastoma tumor heterogeneity[J]. Scientific Reports, 2024, 14: 8570.

[27]
KITAZAWA M, HAYASHI S, IMAMURA M, et al. Deficiency and overexpression of Rtl1 in the mouse cause distinct muscle abnormalities related to Temple and Kagami-Ogata syndromes[J]. Development, 2020, 147(21): dev185918.

[28]
DAVIS E, CAIMENT F, TORDOIR X, et al. RNAi-mediated allelic trans-interaction at the imprinted Rtl1/Peg11 locus[J]. Current Biology, 2005, 15(8): 743-749.

[29]
ITO M, SFERRUZZI-PERRI A N, Edwards C A, et al. A trans-homologue interaction between reciprocally imprinted miR-127 and Rtl1 regulates placenta development[J]. Development, 2015: dev.121996.

[30]
田佺, 赵祎, 王卓, 等. 延边黄牛lncRNA MEG3基因多态性及其与生长性状的关联分析[J]. 中国畜牧兽医, 2021, 48(12): 4567-4574.

TIAN Q, ZHAO Y, WANG Z, et al. Polymorphisms of lncRNA MEG3 gene and its correlation with growth traits in Yanbian yellow cattle[J]. China Animal Husbandry Veterinary Medicine, 2021, 48(12): 4567-4574.

[31]
HERNANDEZ A, MARTINEZ M E, FIERING S, et al. Type 3 deiodinase is critical for the maturation and function of the thyroid axis[J]. The Journal of Clinical Investigation, 2006, 116(2): 476-484.

[32]
ISON E K, KENT-DENNIS C E, FAZIOLI J, et al. Compensatory mechanisms in response to induced hypothyroidism in the late gestation pig fetus[J]. Biology of Reproduction, 2023, 108(5): 731-743.

[33]
MARTINEZ M E, CHARALAMBOUS M, SAFERALI A, et al. Genomic imprinting variations in the mouse type 3 deiodinase gene between tissues and brain regions[J]. Molecular Endocrinology, 2014, 28(11): 1875-1886.

[34]
ARONSON B E, SCOURZIC L, SHAH V, et al. A bipartite element with allele-specific functions safeguards DNA methylation imprints at the Dlk1-Dio3 locus[J]. Developmental Cell, 2021, 56(22): 3052-3065.e5.

[35]
ZHANG L T, WANG J K, CAI G X, et al. Imprinted Dlk1-Gtl2 cluster miRNAs are potential epigenetic regulators of lamb fur quality[J]. BMC Genomics, 2023, 24(1): 632.

[36]
TAKEDA H, CAIMENT F, SMIT M, et al. The callipyge mutation enhances bidirectional long-range DLK1-GTL2 intergenic transcription in cis [J]. Proceedings of the National Academy of Sciences of the United States of America, 2006, 103(21): 8119-8124.

[37]
DAVIS E, JENSEN C H, SCHRODER H D, et al. Ectopic expression of DLK1 protein in skeletal muscle of padumnal heterozygotes causes the callipyge phenotype[J]. Current Biology, 2004, 14(20): 1858-1862.

[38]
TELLAM R L, COCKETT N E, VUOCOLO T, et al. Genes contributing to genetic variation of muscling in sheep[J]. Frontiers in Genetics, 2012, 3: 164.

[39]
FLEMING-WADDELL J N, OLBRICHT G R, TAXIS T M, et al. Effect of DLK1 and RTL1 but not MEG3 or MEG8 on muscle gene expression in Callipyge lambs[J]. PLoS One, 2009, 4(10): e7399.

[40]
GAO Y Q, CHEN X, WANG P, et al. Regulation of DLK1 by the maternally expressed miR-379/miR-544 cluster may underlie callipyge polar overdominance inheritance[J]. Proceedings of the National Academy of Sciences of the United States of America, 2015, 112(44): 13627-13632.

[41]
GUO J Z, ZHAO W, ZHAN S Y, et al. Identification and Expression Profiling of miRNAome in Goat longissimus dorsi Muscle from Prenatal Stages to a Neonatal Stage[J]. PLoS One, 2016, 11(10): e0165764.

[42]
王会, 柴志欣, 朱江江, 等. 牦牛Linc24063的克隆鉴定及其与miRNAs表达水平的相关性分析[J]. 中国农业科学, 2019, 52(14): 2538-2547.

WANG H, CHAI Z X, ZHU J J, et al. Cloning and identification of long-chain non-coding RNA Linc24063 and its correlation with the expression level of miRNAs in yak[J]. Scientia Agricultura Sinica, 2019, 52(14): 2538-2547.

[43]
RAZA S H A, KASTER N, KHAN R, et al. The role of microRNAs in muscle tissue development in beef cattle[J]. Genes, 2020, 11(3): 295.

[44]
LABIALLE S, MARTY V, BORTOLIN‐CAVAILLÉ M, et al. The miR‐379/miR‐410 cluster at the imprinted Dlk1‐Dio3 domain controls neonatal metabolic adaptation[J]. The EMBO Journal, 2014, 33(19): 2216-2230.

[45]
BOYSEN T J, TETENS J, THALLER G. Detection of a quantitative trait locus for ham weight with polar overdominance near the ortholog of the callipyge locus in an experimental pig F2 population[J]. Journal of Animal Science, 2010, 88(10): 3167-3172.

[46]
IMUMORIN I G, KIM E H, LEE Y M, et al. Genome scan for parent-of-origin QTL effects on bovine growth and carcass traits[J]. Frontiers in Genetics, 2011, 2: 44.

[47]
LI J L, YU D W, WANG J, et al. Identification of the porcine IG-DMR and abnormal imprinting of DLK1-DIO3 in cloned pigs[J]. Frontiers in Cell and Developmental Biology, 2022, 10: 964045.

[48]
FATHPOUR H, FOULADI M, JAFARPOUR F, et al. Crosstalk between myostatin and callipyge in CRISPR/Cas9-edited goat fibroblast cells[J]. Research in Veterinary Science, 2026, 198: 105992.

[49]
NI W, YOU S, CAO Y, et al. Aberrant expression of miR-127, miR-21 and miR-16 in placentas of deceased cloned sheep[J]. Research in Veterinary Science, 2016, 105: 200-204.

[50]
STEINHAUSER C B, ASKELSON K, HOBBS K C, et al. Maternal nutrient restriction alters thyroid hormone dynamics in placentae of sheep having small for gestational age fetuses[J]. Domestic Animal Endocrinology, 2021, 77: 106632.

[51]
LI Y H, XIAO P, BOADU F, et al. Beckwith-Wiedemann syndrome and large offspring syndrome involve alterations in methylome, transcriptome, and chromatin configuration[J]. medRxiv, 2025: 2023.12.14.23299981.

[52]
HARA S, MURAMATSU A, TERAO M, et al. Identification of maternal allele sequences of IG-DMR that are essential for neonatal viability[J]. PLoS One, 2025, 20(5): e0324882.

[53]
杨文志, 张明月, 王冠楠, 等. 2个印记的基因间lncRNAs位于牛Dlk1-Dio3印记区域[J]. 畜牧兽医学报, 2016, 47(9): 1848-1852.

YANG W Z, ZHANG M Y, WANG G N, et al. Two imprinted long non-coding RNAs located in cattle Dlk1-Dio3 domain[J]. Acta Veterinaria et Zootechnica Sinica, 2016, 47(9): 1848-1852.

[54]
杨莎, 郝海生, 杜卫华, 等. CRISPR/dCas9技术在基因表达调控中的研究进展[J]. 中国畜牧兽医, 2022, 49(1): 53-59.

YANG S, HAO H S, DU W H, et al. Research progress of CRISPR/dCas9 technology in gene expression regulation[J]. China Animal Husbandry Veterinary Medicine, 2022, 49(1): 53-59.

[55]
王丽娟. 正反交猪骨骼肌生长发育相关基因表达及表观遗传修饰的发育性变化研究[D]. 南京: 南京农业大学, 2011.

WANG, L J. Developmental changes of gene expression and epigenetic modifications related to skeletal muscle growth in reciprocal-cross pigs [D]. Nanjing: Nanjing Agricultural University, 2011.

[56]
张宸艺博, 余彤, 任斌斌, 等. 动物早期胚胎发育中表观重编程的机制[J]. 畜牧兽医学报, 2023, 54(12): 4898-4909.

ZHANG C, YU T, REN B B, et al. Mechanism of epigenetic reprogramming of early animal embryos[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(12): 4898-4909.

文章导航

/

〈 〉