遗传选择是提高家畜生产效率最重要的手段之一[1]。在过去数十年间猪、牛、羊等家畜的传统育种体系下,遗传改良进展缓慢,以长白猪为例,长白猪的年遗传进展约为0.7%[2]。此外,其他重要经济性状的遗传改良速度也十分缓慢,甚至陷入停滞[3]。其根本原因在于:传统育种体系高度依赖表型测定与系谱记录,世代间隔长,每个世代可供选择的优质个体数量有限。基因组选择技术的兴起为打破上述瓶颈提供了重要机遇[4]。基因组选择是通过在训练群体中整合全基因组标记与表型信息建立预测模型,直接估计个体的基因组育种值[5]。这项技术能够有效地缩短育种年限,提高育种效率。然而GS技术的准确性高度依赖大规模参考群体的表型与基因型数据,对于繁殖效率本身较低的牛、羊等大型畜种,每世代可供基因型鉴定与选择的后代数量依然有限,繁殖周期制约遗传改良进程的根本矛盾并未从根本上解决[6]。
近年来,随着基于类器官模型的体外配子发生系统建立,体外配子发生研究取得了突破性进展。目前已经可以利用小鼠多能性干细胞完全体外条件下诱导分化形成功能性配子,结合体外受精以及胚胎移植等技术,利用干细胞来源的配子已获得成活后代[7]。这一技术体系的建立,为干细胞体外育种(In vitro stem cell-based breeding)技术奠定了理论与实验基础。干细胞体外育种技术的核心思路在于:首先建立家畜PSCs并进行长期扩增保存,继而在性腺类器官等体外微环境支持下,将PSCs定向诱导分化为功能性配子,所获配子经体外受精产生早期胚胎后,对胚胎进行活检与全基因组测序,结合基因组选择模型筛选出具有优异育种值的个体,再将选定胚胎移植至母畜子宫内,完成一个完整的体外育种世代。理论上,该技术通过压缩世代间隔并大幅扩增每世代可供选择的后代个体数量,有望将家畜重要经济性状的年遗传增益提升数倍乃至数十倍。
性腺类器官作为模拟体内配子发生微环境的核心体外平台,在干细胞体外育种技术体系中占据关键地位。性腺类器官是在实验室中通过干细胞培育而成的三维性腺结构,能模拟真实性腺的部分形态与功能。传统二维细胞培养难以充分模拟细胞异质性、空间结构及病理微环境,而性腺类器官可在一定程度上准确地反映细胞组成、组织架构与功能特征[8]。然而,目前性腺类器官及体外配子发生技术在大型家畜中的应用仍处于极早期探索阶段,家畜PSCs的稳定建立、物种特异性分化信号的解析,以及重塑精子发生与卵母细胞成熟的体外微环境,均面临重大挑战。
鉴于此,本文将系统介绍目前干细胞育种技术的研究进展,以及性腺类器官模型的构建原理与技术现状,展望该技术体系在主要家畜育种实践中的转化应用前景,以期为相关领域的研究者提供参考。
1 干细胞体外育种的发展
1.1 干细胞体外育种技术在家畜领域的研究进展
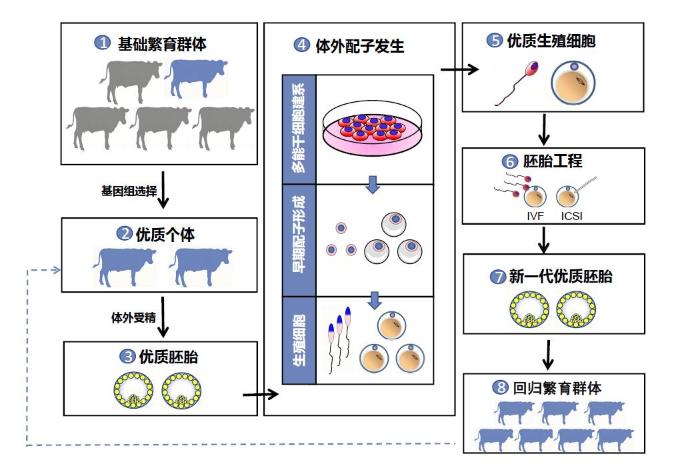
表1 猪、牛、羊PSCs的研究进展Table 1 Research progress of porcine, bovine and ovine PSCs |
| 家畜Livestock | 年份 Year | 作者 Author | 方法 Method | 发现 Finding | 问题 Limitation |
|---|---|---|---|---|---|
| 猪Porcine | 2009 | Ezashi等[13]、Wu等[14]和Esteban等[15] | 病毒载体的体细胞重编程技术 | 得到了3种iPSCs | 多能性完全依赖外源因子的持续表达,无法完全重编程 |
| 2022 | Zhi等[16] | “3i/LAF”培养基 | 从E8~E10胚胎中建立猪EpiSCs | 依然不具备真正的原始态多能性 | |
| 2024 | Xiang等[17] | 培养基4FIXY衍生ESCs与三维两步分化 | 从ESCs生成猪类囊胚 | 无法像真实囊胚一样,完成后续的着床与妊娠发育 | |
| 2024 | Choi等[18] | 无血清条件下开发了一种由FGF2、IWR-1和WH-4-023组成的简化培养基 | 抑制WNT和SRC能够建立单细胞传代的多能性干细胞,可以在无血清条件下实现无饲养层扩增。 | 需要依赖商用外源耗材,同时还缺失体内发育功能验证 | |
| 2025 | Wang等[19] | WNT小分子抑制剂的化学培养条件操控法 | 发现WNT抑制剂能够维持猪ESCs的多能性,抑制ESCs转化为XEN细胞 | 没有形成具有种系嵌合体和传代特性的高质量猪胚胎干细胞 | |
| 2026 | Shi等[20] | 新型复合培养基Cocktail LACID | 建立了一套能稳定获得高质量猪诱导多能干细胞的改良方案 | 难以形成嵌合胚胎,无法通过核移植发育成囊胚 | |
| 牛 Bovine | 2011 | Han等[21] | 逆转录病毒作为载体 | 成功建立了牛iPSC样细胞 | 多能性完全依赖外源转基因的持续表达 |
| 2018 | Bogliotti等[22] | 含FGF2和WNT抑制剂的培养体系 | 成功建立稳定Primed型的牛ESCs | 研究未进行胚胎移植,无法验证其能否发育获得完整个体 | |
| 2021 | Soto等[23] | 优化了该培养体系 | 简化了牛ESCs的构建流程 | 依然无法突破处于Primed多能状态的限制 | |
| 2024 | Shirasawa等[24] | 革新了植入前胚胎和ESCs多能性培养技术 | 成功开发出一种从新构建的牛ESCs中稳定诱导PGCLCs的新方法 | 尚未被证明具备发育为功能性配子的能力 | |
| 2024 | Zhi等[25] | 利用“3i/LAF”培养条件 | 成功构建了牛EpiSCs培养系统 | 尚未实现由EpiSCs体外诱导获得具备受精能力的功能性配子 | |
| 2024 | Smith等[26] | 构建牛孤雄以及孤雌单倍体胚胎干细胞体系,筛选体外优良基因组 | 实现了雌雄单倍体细胞组合定向培育成指定基因组的牛后代 | 规避减数分裂基因随机重组,未实现足月妊娠 | |
| 2025 | Yang等[27] | 将新开发的“鱼精蛋白辅助的单倍体胚胎干细胞胞质内注射技术”与先进的基因编辑方法相结合 | 首次成功建立了牛和羊的单倍体胚胎干细胞系,成功培育出存活以及正常生长繁殖的牛的基因修饰个体 | 着床后发育仍存在明显障碍,其发育稳定性和规模化应用效率仍有待提高 | |
| 羊 Ovine | 2020 | Malik等[28] | 孤雌激活观察到了类似体内胚胎发育的过程 | 进一步证实了ESCs衍生的卵母细胞样细胞具有全能性 | 无法证明诱导产生的卵母细胞样细胞具备功能性配子的完整发育潜能 |
| 2025 | Saadeldin等[29] | 结合无饲养层和子宫内膜类器官培养基培养 | 实现胚胎体外发育至受精后第20 d | 仅完成体外20 d胚胎培养的形态与分子表征,缺乏体内移植验证 | |
| 2025 | Wang等[30] | 导入多能转录因子,将黑骨绵羊成纤维细胞重新组合而获得iPSCs | 发现该细胞具备完整三胚层分化潜能,同时可以作为核供体提升体细胞核移植胚胎卵裂与囊胚发育效率 | 必须依赖外源转基因才能维持多能性,无法制备无转基因干细胞 |
猪在胚胎发育[11]、生理学特征[12]等方面与人类更具相似性,因此,关于猪PSCs的研究意义重大。2009年,Ezashi等[13]、Wu等[14]和Esteban等[15]基于病毒载体的体细胞重编程技术得到了3种诱导多能干细胞(Induced pluripotent stem cells, iPSCs),但这些细胞多能性完全依赖于外源因子的持续表达,无法实现真正的重编程。2022年,Zhi等[16]利用所开发的“3i/LAF”培养基建立猪上胚层样细胞(Epiblast-like cells, EpiSCs),但依然不具备真正的原始态多能性(Naive)。2024年Xiang等[17]建立由Activin A、IGF1、IL-6和可溶性IL-6受体α,以及WNT信号抑制剂XAV939、IWR1和ROCK抑制剂Y-27632组成的4FIXY培养体系,结合3D两步分化策略,从ESCs生成猪类囊胚,实现了从单个细胞到类胚胎结构的组装。但后续研究发现,上述方案获得的类囊胚无法像真实囊胚一样,完成后续的着床与妊娠发育。2024年,Choi等[18]在无血清条件下开发了一种由FGF2、IWR-1和WH-4-023组成的简化培养基,发现抑制WNT和SRC能够建立单细胞传代的多能性干细胞,还可以在无血清条件下实现无饲养层扩增,但需要依赖商用外源耗材,同时还缺失体内发育功能验证。2025年,Wang等[19]发现WNT抑制剂能够维持猪ESCs的多能性,抑制ESCs转化为XEN细胞,但没有形成具有种系嵌合体和传代特性的高质量猪ESCs。Shi团队[20]在2026年基于新型复合培养基Cocktail LACID,建立了一套能稳定获得高质量猪iPSCs的改良方案。
牛ESCs的最初获取方式借鉴了小鼠的培养体系,随着科研人员的不断努力,牛的PSCs也取得了一系列的成就。2011年,韩晓平团队[21]首次使用逆转录病毒载体将牛胚胎成纤维细胞诱导为牛iPSC样细胞,但其多能性完全依赖外源转基因的持续表达。2018年,Bogliotti等[22]利用含FGF2和WNT抑制剂的培养体系,成功建立稳定Primed型的牛ESCs。但研究未进行胚胎移植,无法验证其能否发育获得完整个体。随后,Soto等[23]进一步优化了该培养体系,简化了牛ESCs的构建流程。2024年,Shirasawa等[24]革新了植入前胚胎和ESCs多能性培养技术,成功开发出一种从新构建的牛ESCs中稳定诱导原始生殖细胞样细胞(Primordial germ cell-like cells, PGCLCs)的新方法,但尚未被证明具备发育为功能性配子的能力。同年,Zhi等[25]利用“3i/LAF”培养条件成功构建了牛EpiSCs培养系统,该研究仅验证了牛的EpiSCs具备向PGCLCs诱导分化的潜力,但尚未实现由EpiSCs体外诱导获得具备受精能力的功能性配子。2024年,Smith团队[26]通过构建牛孤雄以及孤雌单倍体ESCs体系,筛选体外优良基因组,实现了雌雄单倍体细胞组合定向培育成指定基因组的牛后代,证明了单倍体细胞可替代精子完成早期胚胎构建,但该技术规避减数分裂基因随机重组,未实现足月妊娠。Yang团队[27]在2025年通过利用新开发的“鱼精蛋白辅助的单倍体胚胎干细胞胞质内注射(Protamine intracytoplasmic haES cell injection, Pro-iCHI)技术”,结合先进的基因编辑方法,首次成功建立了牛和羊的单倍体ESCs系,成功培育出存活以及正常生长繁殖的牛的基因修饰个体。尽管基于Pro-iCHI技术获得的胚胎囊胚形成率已接近体外受精胚胎,但其着床后发育仍存在明显障碍,提示其发育稳定性和规模化应用效率仍有待进一步提高。
2020年,Malik等[28]利用BMP4与RA体系诱导分化获得卵母细胞样细胞,并通过孤雌激活观察到了类似体内胚胎发育的过程,进一步证实了ESCs衍生的卵母细胞样细胞具有全能性,但无法证明诱导产生的卵母细胞样细胞具备功能性配子的完整发育潜能。Saadeldin等[29]在2025年通过结合无饲养层和子宫内膜类器官培养基培养,成功实现了胚胎体外发育至受精后第20天,但仅完成体外20 d胚胎培养的形态与分子表征,缺乏体内移植验证。Wang等[30]通过导入多能转录因子,将黑骨绵羊成纤维细胞重新组合而获得iPSCs,研究发现该细胞具备完整三胚层分化潜能,同时可以作为核供体提升体细胞核移植胚胎卵裂与囊胚发育效率。
目前猪、牛、羊等家畜PSCs培养体系已得到多方面优化,借助培养基改良与信号通路调控实现细胞稳定传代,还可诱导产生PGCLCs等生殖前体细胞。但各类家畜PSCs普遍难以维持原始态多能性,诱导得到的生殖细胞也缺乏发育为功能性配子的体内功能验证,仅能完成体外分子与形态鉴定。
1.2 干细胞体外育种技术的优势和局限性
干细胞体外育种技术在突破传统育种瓶颈的同时,也面临着许多现实挑战。家畜PSCs本身的多能性稳定性不足,因此后续诱导形成的生殖细胞质量难以保障。PGCLCs的诱导效率普遍偏低,且不同物种间调控生殖细胞发育的关键信号通路尚未被完全阐明,进一步限制了体外配子的生成。即便诱导流程顺利完成,体外获得的配子仍可能存在染色体异常、印记紊乱等遗传与表观遗传层面的缺陷,直接影响后续胚胎发育与后代健康。此外,该技术对培养基、试剂、设备和操作条件的严苛要求,也使得其初期研发与应用成本居高不下,短期内难以在家畜产业中实现大规模推广。
2 干细胞体外育种的核心——配子体外发生
2.1 配子体外发生的研究进程
表2 干细胞体外分化配子获得存活后代的研究进展Table 2 Research progress on viable offspring generated from in vitro differentiated stem cell-derived gametes |
| 类型 Type | 年份Year | 作者 Author | 干细胞类型 Stem cell type | 诱导分化方式 Induction and differentiation method |
|---|---|---|---|---|
| 利用干细胞诱导分化精子 In vitro derivation of sperm from stem cells | 2011 | Hayashi等[33] | ESCs、iPSCs | 将ESCs和iPSCs诱导EpiLCs,之后通过细胞因子,将EpiLCs诱导为PGCLCs |
| 2016 | Zhou等[34] | ESCs | 完全体外条件下完成减数分裂,分化为功能性圆形精子细胞,且使用胞质内单精子注射 | |
| 2016 | Ishikura等[35] | ESCs | 将ESCs诱导为PGCLCs,后与胚胎睾丸体细胞共培养,成功分化为精原细胞样细胞,并进一步扩增获得具有SSCs活性的生殖干细胞样细胞 | |
| 2021 | Ishikura等[36] | ESCs | 将小鼠ESCs诱导为PGCLCs,该类细胞完成表观遗传重编程后,能够在重构睾丸中分化为精原细胞样细胞并扩增为GSCLCs,在体内移植或离体培养后通过ICSI获得后代 | |
| 2022 | Oikawa等[37] | ESCs | 大鼠ESCs诱导为上胚层样细胞后,通过3D技术分化为PGCLCs,移植入无生殖系小鼠睾丸完成精子发生,经ICSI获得后代 | |
| 2025 | Li等[38] | ESCs | 利用转录因子在体外诱导小鼠PGCLCs,与睾丸体细胞共培养后经ROSI获得后代 | |
| 2026 | Yoshino等[39] | ESCs、iPSCs | 将小鼠ESCs/iPSCs重构为睾丸体细胞样细胞,之后组装形成睾丸类器官,使PGCLCs在该类器官中分化为GSCLCs,移植后产生成熟精子并经ICSI获得后代 | |
| 利用干细胞诱导分化卵子 In vitro derivation of oocytes from stem cells | 2012 | Hayashi等[40] | ESCs、iPSCs | 将ESCs与iPSCs诱导分化为PGCLCs,之后与雌性胚胎性腺体细胞混合聚集构建重构卵巢,共培养过程中完成X染色体激活、基因组印记擦除并启动减数分裂相关程序,移植小鼠体内获得卵泡期卵母细胞 |
| 2016 | Hikabe等[41] | ESCs、iPSCs | 先将小鼠ESCs/iPSCs诱导为PGCLCs,再经重构卵巢培养、体外成熟后受精获后代 | |
| 2021 | Yoshino等[42] | ESCs | 将ESCs诱导分化为PGCLCs,并与胎儿卵巢体细胞样细胞共聚集来组装体外重构卵巢卵泡结构,胎儿卵巢体细胞样细胞作为颗粒细胞支持PGCLCs完成减数分裂并发育为功能卵母细胞 | |
| 2023 | Murakami等[43] | iPSCs | 将小鼠iPSCs中XY染色体转换为XX染色体,再诱导分化为功能性卵母细胞,受精产生小鼠后代 |
近年来,使用PSCs包括ESCs和iPSCs体外重建生殖细胞(Germ cells, GCs)在小鼠的研究中取得了较好的进展。在干细胞诱导精子发生的研究中,Hayashi等[33]在2011年首次成功将ESCs和iPSCs诱导上胚层样细胞(Epiblast-like cells, EpiLCs),而添加细胞因子将EpiLCs诱导为PGCLCs。将PGCLCs移植入睾丸后获得功能性精子,是IVG领域的奠基性研究。2016年,Zhou团队[34]将小鼠ESCs来源的PGCLCs在完全体外条件下完成减数分裂,分化为功能性圆形精子细胞,之后经过单精子注射(Intracytoplasmic sperm injection, ICSI)成功获得后代个体。同年,日本京都大学Ishikura等[35]将小鼠ESCs或iPSCs诱导的PGCLCs与胚胎睾丸体细胞共培养,成功分化为精原细胞样细胞,并进一步扩增获得具有精原干细胞(Spermatogonial stem cells, SSCs)活性的生殖干细胞样细胞(Germline stem cell-like cells, GSCLCs)。2021年,Ishikura团队[36]将小鼠ESCs诱导为PGCLCs,该类细胞完成表观遗传重编程后,能够在重构睾丸中分化为精原细胞样细胞并扩增为GSCLCs,在体内移植或离体培养后通过ICSI获得后代。Oikawa等[37]在2022年将大鼠ESCs诱导为EpiSCs,并通过3D培养技术分化为PGCLCs,移植到无生殖系小鼠睾丸完成精子发生后经ICSI获得后代。2025年,Li等[38]利用转录因子在体外诱导小鼠PGCLCs,与睾丸体细胞共培养后,经圆形精子细胞显微注射技术(Round spermatid injection, ROSI)获得后代。Yoshino团队[39]在2026年将小鼠ESCs/iPSCs重构为睾丸体细胞样细胞,之后组装形成睾丸类器官,使PGCLCs在该类器官中分化为GSCLCs,移植后产生成熟精子并经ICSI获得后代。
在干细胞诱导卵子发生的研究中,Hayashi团队[40]在2012年选用ESCs与iPSCs作为起始材料,将其诱导分化为PGCLCs,之后与雌性胚胎性腺体细胞混合聚集构建重构卵巢,共培养过程中完成X染色体激活、基因组印记擦除并启动减数分裂相关程序,移植小鼠体内获得卵泡期卵母细胞,经体外受精成功获得小鼠子代。2016年,Hikabe等[41]先将小鼠ESCs/iPSCs诱导为PGCLCs,在重构卵巢培养体系中发育成熟,并通过受精获得后代。2021年,Yoshino团队[42]将ESCs诱导分化为PGCLCs,并与胎儿卵巢体细胞样细胞共聚集来组装体外重构卵巢卵泡结构,胎儿卵巢体细胞样细胞可作为颗粒细胞支持PGCLCs完成减数分裂并发育为功能卵母细胞,卵母细胞经体外受精后能够正常发育并产下存活子代。2023年,Murakami团队[43]将小鼠iPSCs中XY染色体转换为XX染色体,再诱导分化为功能性卵母细胞,受精产生小鼠后代。
以小鼠为模式动物的体外配子发生研究已积累大量成果,研究人员依托ESCs与iPSCs可稳定诱导生成PGCLCs,搭建起体外重建生殖细胞的基础流程。小鼠成熟的体外配子发生为家畜配子体外重建研究提供了理论思路,但受限于家畜PSCs多能性维持困难、性腺体外微环境难以复刻等问题,将小鼠技术体系转化应用于家畜仍面临巨大挑战。
2.2 家畜配子体外发生所面临的挑战
性腺微环境是配子发生和成熟的必要条件,三维类器官培养体系打破了传统二维培养的局限,已经成为推动家畜体外配子发生的关键技术。然而,目前该技术仍面临诸多挑战:一方面,配子来源于PSCs的分化,而PSCs的遗传效应和表观遗传调控在整个发育过程中难以精准控制[44];另一方面,配子体外发生减数分裂的启动和完成效率极低,即便在小鼠中,体外减数分裂进程的同步性和完整性也远不如体内,常导致非整倍体。配子体外发生体系在小鼠中已经相对成熟,但是由于家畜与小鼠的生殖发育时间有着巨大的差异,无法长时间对家畜细胞活力、染色体稳定性和减数分裂进程进行精确调控,同时这两种物种间生殖分化信号通路存在着本质分歧,适合小鼠的诱导方案在家畜中诱导效率极低,使得小鼠中的研究体系难以直接应用到家畜上。
颗粒细胞和支持细胞是构建性腺类器官以及支撑家畜配子体外发生的核心功能单元,目前颗粒细胞和支持细胞主要采取胚胎性腺分离与干细胞定向分化两种途径。小鼠通常采用胚胎性腺分离,所得性腺体细胞生理状态稳定、谱系完整,可高效组装性腺微环境,但家畜早期胚胎性腺取材窗口期短、解剖难度大、样本产量极低,且存在严格的伦理限制,无法在家畜中实现规模化应用。而干细胞定向分化途径可规避胚胎取材的样本短缺与伦理问题,能够体外持续获得性腺体细胞,是家畜性腺类器官构建的理想发展方向。但该技术存在极强的物种特异性壁垒,小鼠已形成完善的分化调控体系,而家畜支持细胞、颗粒细胞的发育起源与转录调控网络与小鼠差异显著,现有诱导方案难以通用,且家畜干细胞向性腺体细胞定向分化的机制与体系仍缺乏系统验证,极大限制了家畜性腺类器官及配子体外发生技术的发展。
总的来讲,体外配子发生既要严格控制源头PSCs的质量,也要稳定优化性腺类器官的分化条件。如何建立稳定、高效、可控的家畜体外配子发生体系,持续获得高质量配子,是当前面临的核心挑战。亲本印迹的擦除和重建是功能性配子的核心要求。在长达数月的大型动物体外培养中,如何监控和确保印迹的正常、评估表观遗传风险,是巨大的科学空白。
3 性腺类器官研究进展
3.1 性腺类器官模型的构建
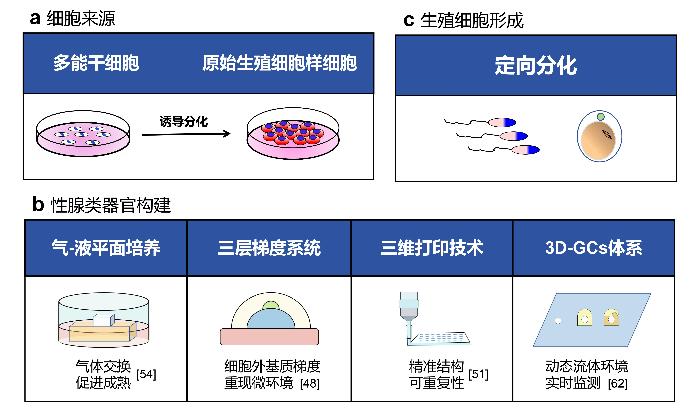
表3 性腺类器官的构建与应用Table 3 Construction and application of gonadal organoids |
| 性腺 Gonad | 物种 Species | 年份 Year | 作者 Author | 培养技术 Culture technique | 应用 Application |
|---|---|---|---|---|---|
| 睾丸 Testis | 小鼠 | 2011 | Sato等[47] | 气-液平面培养法 | 实现了具有受精功能的小鼠精子体外生成 |
| 2017 | Alves-Lopes等[48] | 三层梯度系统 | 成功构建了睾丸类器官 | ||
| 2019 | Sakib等[49] | 微孔培养法 | 构建出具有器官型结构的睾丸类器官 | ||
| 2020 | Majidi-Gharenaz等[50] | 睾丸脱细胞支架 | 小鼠精原干细胞进行三维培养 | ||
| 2021 | Richer等[51] | 三维打印技术 | 实现了早期生殖细胞的长期维持及减数分裂启动 | ||
| 2024 | Stopel等[52] | 气-液平面培养法 | 构建可复刻体内睾丸生精小管样结构的小鼠胚胎期类器官 | ||
| 2026 | Yoshino等[39] | 三维共培养体系 | 重构了睾丸的发育全过程,复刻了体内性别决定机制,产生了形成生精小管和相邻间质组织的细胞类型 | ||
| 家畜 | 2019 | Sakib等[53] | 微孔培养法 | 构建出具有睾丸特异结构的猪睾丸类器官 | |
| 2021 | Cham等[54] | 气-液平面培养法 | 建出包含血管结构、高度模拟天然未成熟睾丸组织的高仿生类器官 | ||
| 2022 | Cortez等[55] | 三维自组装技术 | 成功诱导组装出牛睾丸类器官 | ||
| 2024 | Cortez等[56] | 三维自组装技术 | 优化类器官三维形态与结构稳定性 | ||
| 2025 | Elsenhans等[57] | 微孔聚集培养技术 | 开发了一套简便、可重复的标准化睾丸类器官批量制备体系 | ||
| 卵巢 Ovary | 小鼠 | 2016 | Morohaku等[58] | 气-液平面培养法 | 优化卵泡发育微环境,实现冻存性腺组织分化获得成熟卵母细胞 |
| 2017 | Laronda等[59] | 三维打印技术 | 调控支架孔隙的前进角优化卵泡-支架,显著提升了卵泡的存活率与发育潜能 | ||
| 2021 | Li等[60] | 三维培养技术 | 模拟了体内卵巢的结构与功能,可支持生殖细胞完成减数分裂并生成功能性卵母细胞 | ||
| 2024 | Dipali等[61] | 三维培养技术 | 自主开发出一种可自发组装的新型卵巢体细胞类器官模型 | ||
| 2025 | Zhao等[62] | 3D-GCs体系 | 体外培养小鼠未成熟的生发泡期卵母细胞 | ||
| 2026 | Kang等[63] | 三维打印技术 | 精准制备出动态三维体外培养平台 | ||
| 家畜 | 2025 | Gómez-Álvarez等[64] | 机械-酶法 | 利用牛卵巢表面上皮细胞成功构建了牛卵巢类器官 |
3.2 睾丸类器官的构建与应用
2011年,Sato团队[47]采用气-液平面培养法,建立了具有受精功能的小鼠精子体外发生模型,但该模型依赖新生小鼠睾丸组织块,且重复性差,难以标准化、规模化。2017年,Alves-Lopes等[48]成功构建了三层梯度培养的睾丸类器官,首次实现了无组织块的类器官构建。2019年,Sakib等[49]使用微孔培养法构建出具有正常小鼠睾丸器官结构的类器官模型,更完整地模拟了体内器官的细胞组成和微环境,但无法完全模拟体内睾丸的空间分布与信号梯度。为了解决细胞空间分布的问题,Majidi等[50]在2020年采用睾丸脱细胞支架对小鼠精原干细胞进行三维培养,脱细胞支架保留了天然睾丸的细胞外基质,解决了结构支撑问题,但支架制备工艺复杂,批次间差异大。Richer团队[51]在2021年使用三维打印技术构建了稳定可控的支架结构,但由于体系的营养与氧气供应不均匀,限制了类器官的长期培养。2024年,Stopel等[52]利用Transwell气液界面培养体系,构建出了小鼠胚胎期类器官,该类器官可以复刻体内睾丸生精小管样结构。直到2026年,Yoshino等[39]利用小鼠PSCs重构了睾丸的发育全过程,复刻了体内性别决定机制,产生了形成生精小管和相邻间质组织的细胞类型,重建的睾丸组织整合了PSCs来源的原始生殖细胞,并支持其分化为精原干细胞。
与小鼠模型相比,家畜的相关研究仍较为有限,技术体系的成熟度与应用广度存在明显差距。2019年,Sakib等[53]采用微孔培养法构建出具有睾丸特异结构的猪睾丸类器官,但类器官结构仅能形成基础的曲细精管样聚集,缺乏功能性血管网络,无法模拟体内睾丸的营养供应与微环境。2021年,Cham等[54]采用气-液平面培养法建出包含血管结构、高度模拟天然未成熟睾丸组织的高仿生类器官,通过优化细胞接种方式与气液界面的营养交换,成功诱导形成了包含血管样结构的类器官,解决了类器官中心缺氧坏死的问题,大幅提升了结构的仿生度。Cortez等[55]在2022年利用超低吸附培养皿联合基底膜基质的三维自组装体系,成功诱导组装出牛睾丸类器官,该类器官能维持体细胞特征重塑,具备稳定的类固醇生成与睾酮内分泌活性,但该体系仅包含体细胞组分,缺乏生殖细胞。2024年,Cortez等[56]发现可以整合入睾丸类器官的牛脂肪间充质干细胞,该干细胞可以重塑细胞空间分布,但不会显著改变睾丸细胞整体功能基因的表达特征。Elsenhans等[57]在2025年以青春期前大鼠和猪的原代睾丸细胞为起始材料,利用微孔聚集培养技术开发了一套简便的睾丸类器官批量制备体系,该体系能够生成大量高度同质的睾丸类器官,但这种类器官长期培养稳定性与完整生精成熟潜能还有待确定。
小鼠睾丸类器官经过多种培养策略的不断优化,现在可以复刻睾丸生精小管结构并支撑体外精子发生,但各类方案仍存在标准化难、微环境模拟不完整等短板。而家畜睾丸类器官研究起步晚以及整体进展有限,现有构建体系大多仍依赖原代睾丸组织细胞,且普遍存在缺少完整生殖细胞、长期培养稳定性不足、生精成熟能力缺失等关键缺陷。
3.3 卵巢类器官的构建与应用
在睾丸类器官技术快速发展的同时,卵巢类器官的体外构建同样取得了突破,该模型在雌性性腺发育机制的研究中发挥了重要作用。在小鼠中,Morohaku团队[58]在2016年以小鼠E12.5雌性胚胎性腺组织为材料,采用Transwell介导的气液界面培养体系,分阶段培养并添加雌激素受体拮抗剂优化卵泡发育微环境,实现冻存性腺组织分化获得成熟卵母细胞,所得配子还可受精并产下健康子代。2017年,Laronda等[59]采用三维打印技术改进了支架孔隙的前进角,优化了卵泡-支架相互作用,同时显著提升了卵泡的存活率。但该方案仅解决了卵泡的短期存活问题,无法模拟卵巢完整的三维微环境。2021年,Li等[60]利用三维培养系统模拟体内卵巢的结构,该系统可支持生殖细胞完成减数分裂并生成功能性卵母细胞,解决了卵泡的短期存活问题,但无法支持卵泡完成减数分裂与成熟。2024年,Dipali等[61]采用无支架琼脂糖微模具三维培养技术开发出一种可自发组装的新型卵巢体细胞类器官模型。该类器官能够长期保留卵巢体细胞的细胞异质性,可正常完成细胞群维持、胞外基质合成与激素分泌等生理功能。2025年,Zhao等[62]利用层粘连蛋白模拟肽修饰的生物水凝胶,联合颗粒细胞构建了一种新型三维共培养(3D-GCs)体系,用以体外培养小鼠未成熟的生发泡期卵母细胞。2026年,Kang等[63]利用三维打印技术,精准制备出动态三维体外培养平台。该体系突破了静态培养无法精准复刻体内动态生理微环境的局限,但仅在小鼠卵巢卵泡模型中完成了效果验证,尚未在大家畜卵巢、睾丸类器官体系中完成验证。相较于小鼠卵巢类器官领域的快速发展,家畜卵巢类器官的研究报道仍较为有限。直到2025年,Gómez-Álvarez团队[64]采用机械-酶法,利用牛卵巢表面上皮细胞成功构建了牛卵巢类器官。然而,该模型主要来源于卵巢表面上皮,尚不能完整重现卵泡发生所需的生殖细胞-颗粒细胞-间质细胞互作。因此,相较于模式动物而言,家畜卵巢类器官在细胞来源、组织复杂性和生理功能重建等方面仍面临较大挑战。
性腺类器官的构建与功能优化,是突破家畜IVG技术瓶颈、推动干细胞体外育种走向实践的核心技术路径。当前亟待解决的关键问题包括:家畜物种特异性体细胞信号通路的系统解析、全干细胞来源支持细胞体系的建立,以及能够稳定支持PSCs来源生殖细胞完成减数分裂的三维微环境重建。
4 总结与展望
干细胞体外育种技术在家畜中的落地,首要前提是解决家畜PSCs的稳定建系问题。目前猪、牛、绵羊等主要畜种的PSCs虽已有初步报道,但其多能性稳定性、长期传代能力及向生殖细胞定向分化的效率,仍远低于小鼠模型水平。与小鼠ESCs可高效实现生殖系嵌合、四倍体补偿等关键验证不同,家畜PSCs大多仍停留在Primed态,难以支撑完整的体外配子发生流程。未来的研究需聚焦于多能性调控网络的解析,优化培养体系以实现真正Naive态细胞的稳定建立。
家畜体外配子发生需厘清家畜与小鼠生殖分化通路的物种特异性差异,调整适配于家畜的诱导,提升生殖前体细胞分化效率。在此基础上调控PSCs表观遗传进程,缓解体外减数分裂启动迟缓、分裂同步性差等缺陷,稳定配子基因组完整性。而性腺类器官作为支撑生殖细胞成熟的载体,后续研究将聚焦PSCs定向分化路径,系统解析家畜性腺支持细胞、颗粒细胞特化的物种特异性转录与信号调控网络,搭建脱离胚胎取材的性腺基质细胞稳定诱导方案。同时优化性腺类器官的三维培养体系,更好地复刻体内的内分泌微环境,促进家畜体外配子发生的成熟。
将干细胞技术与基因组选择技术联用,依托基因组信息筛选优良个体繁育后代,同时在细胞层面实现胚胎早期鉴定筛选,有效提升选育精准度,进而提高家畜繁殖效率、加快良种培育步伐。同时借助基因编辑技术可靶向修饰干细胞目标基因,编辑后的干细胞能够定向分化为生殖细胞、组织器官细胞等特定细胞类型,实现家畜性状定向改良。
长远来看,干细胞体外育种技术在主流家畜品种中的使用将颠覆传统家畜育种模式。但技术突破不等于落地应用,配套政策法规仍有待健全。如何严守生物安全、生态安全与伦理底线,搭建规范明晰的监管体系与商业化体系,是该技术从科研成果迈向产业实践的核心挑战。此外,公众对干细胞、基因编辑育种技术的认知与接纳程度,也影响技术的推广与应用。